从三叠纪到白垩纪,1.6亿年的地球霸主。30种经典恐龙图鉴,从入门到精通的恐龙百科全书。
恐龙(Dinosauria)是一类已经灭绝的爬行动物,它们在地球上生活了大约1.6亿年(约2.3亿年前至6600万年前)。恐龙属于"主龙类"(Archosauria),与现代鳄鱼、鸟类有近亲关系。关键区分点:恐龙的四肢是直立在身体正下方的,而不是像蜥蜴那样向两侧伸展——这是恐龙区别于其他爬行动物的核心特征。
很多人把翼龙(会飞的)、鱼龙和蛇颈龙(海里游的)也归为恐龙,这是常见误区。严格意义上,恐龙特指陆生的主龙类,翼龙、鱼龙、蛇颈龙、沧龙等虽与恐龙同时代且也是爬行动物,但它们不属于恐龙分类。不过从科普角度,我们也会介绍这些"恐龙时代的海洋霸主和天空霸主",因为它们是恐龙时代生态系统的重要组成部分。
恐龙按骨盆结构分为两大类:蜥臀目(Saurischia,耻骨向前延伸)和鸟臀目(Ornithischia,耻骨向后延伸,像鸟类)。有趣的是,鸟类其实是从蜥臀目演化出来的——名字虽然有"鸟"字,但鸟臀目和鸟类的亲缘关系其实更远。蜥臀目包含所有肉食恐龙和巨大的长脖子蜥脚类;鸟臀目则包括各种"长着奇怪装备"的植食恐龙,如角龙、剑龙、甲龙、鸭嘴龙等。
蜥脚类和兽脚类恐龙拥有类似现代鸟类的气囊系统,空气在体内"单向流动",效率远超哺乳动物的"潮式呼吸"。这让它们在含氧量较低的中生代也能维持巨大体型的能量需求。脊柱上的空洞(侧凹)就是气囊延伸进骨骼的证据。
恐龙的四肢直接位于身体正下方,这是"柱状直立"姿态。对比蜥蜴的"半趴式"四肢外展姿态,直立步态大幅减少了肌肉做功,让恐龙能支撑更大体重、奔跑更快、耐力更强。这是恐龙称霸陆地的核心解剖优势。
恐龙骨骼像树木一样有年轮。与哺乳动物不同,恐龙终生持续生长——只是幼年期生长极快(巨型蜥脚类日增10-15公斤),成熟后减缓但不停止。这意味着同一物种的不同年龄个体可能看起来差异巨大,曾导致许多"新种"其实只是幼年个体。
大型植食恐龙每天需要数百公斤植物。许多蜥脚类和鸭嘴龙类吞食胃石(类似现代鸟类的砂囊),在肌肉发达的胃中磨碎坚韧的松柏和蕨类。有些种类可能依赖发酵后肠(类似现代反刍),在巨大的肠道里靠微生物分解纤维素。
💡 可以看到,植食恐龙追求"大"——越大越不容易被吃;肉食恐龙追求"快"——够快才能追上猎物。这是进化中两条截然不同的生存路线。
恐龙生活的时代叫做"中生代",距今2.52亿年至6600万年前,分为三个纪:三叠纪、侏罗纪、白垩纪。恐龙在三叠纪末期出现,侏罗纪开始称霸陆地,白垩纪达到鼎盛,最终在白垩纪末期的大灭绝中退场。整个恐龙时代持续了约1.6亿年——作为对比,人类(智人)才存在了约30万年。
| 特征 | 三叠纪 | 侏罗纪 | 白垩纪 |
|---|---|---|---|
| 时间范围 | 2.52-2.01亿年前 | 2.01-1.45亿年前 | 1.45-0.66亿年前 |
| 气候 | 干燥炎热 | 温暖湿润 | 更暖,后期降温 |
| 大陆格局 | 盘古大陆统一 | 开始分裂 | 接近现代格局 |
| 代表植物 | 蕨类、松柏、苏铁 | 松柏、苏铁繁盛 | 被子植物崛起 |
| 恐龙特征 | 小型,刚起步 | 巨型化 | 多样性巅峰 |
| 代表恐龙 | 始盗龙、艾雷拉龙 | 腕龙、异特龙、剑龙 | 霸王龙、三角龙、速龙 |
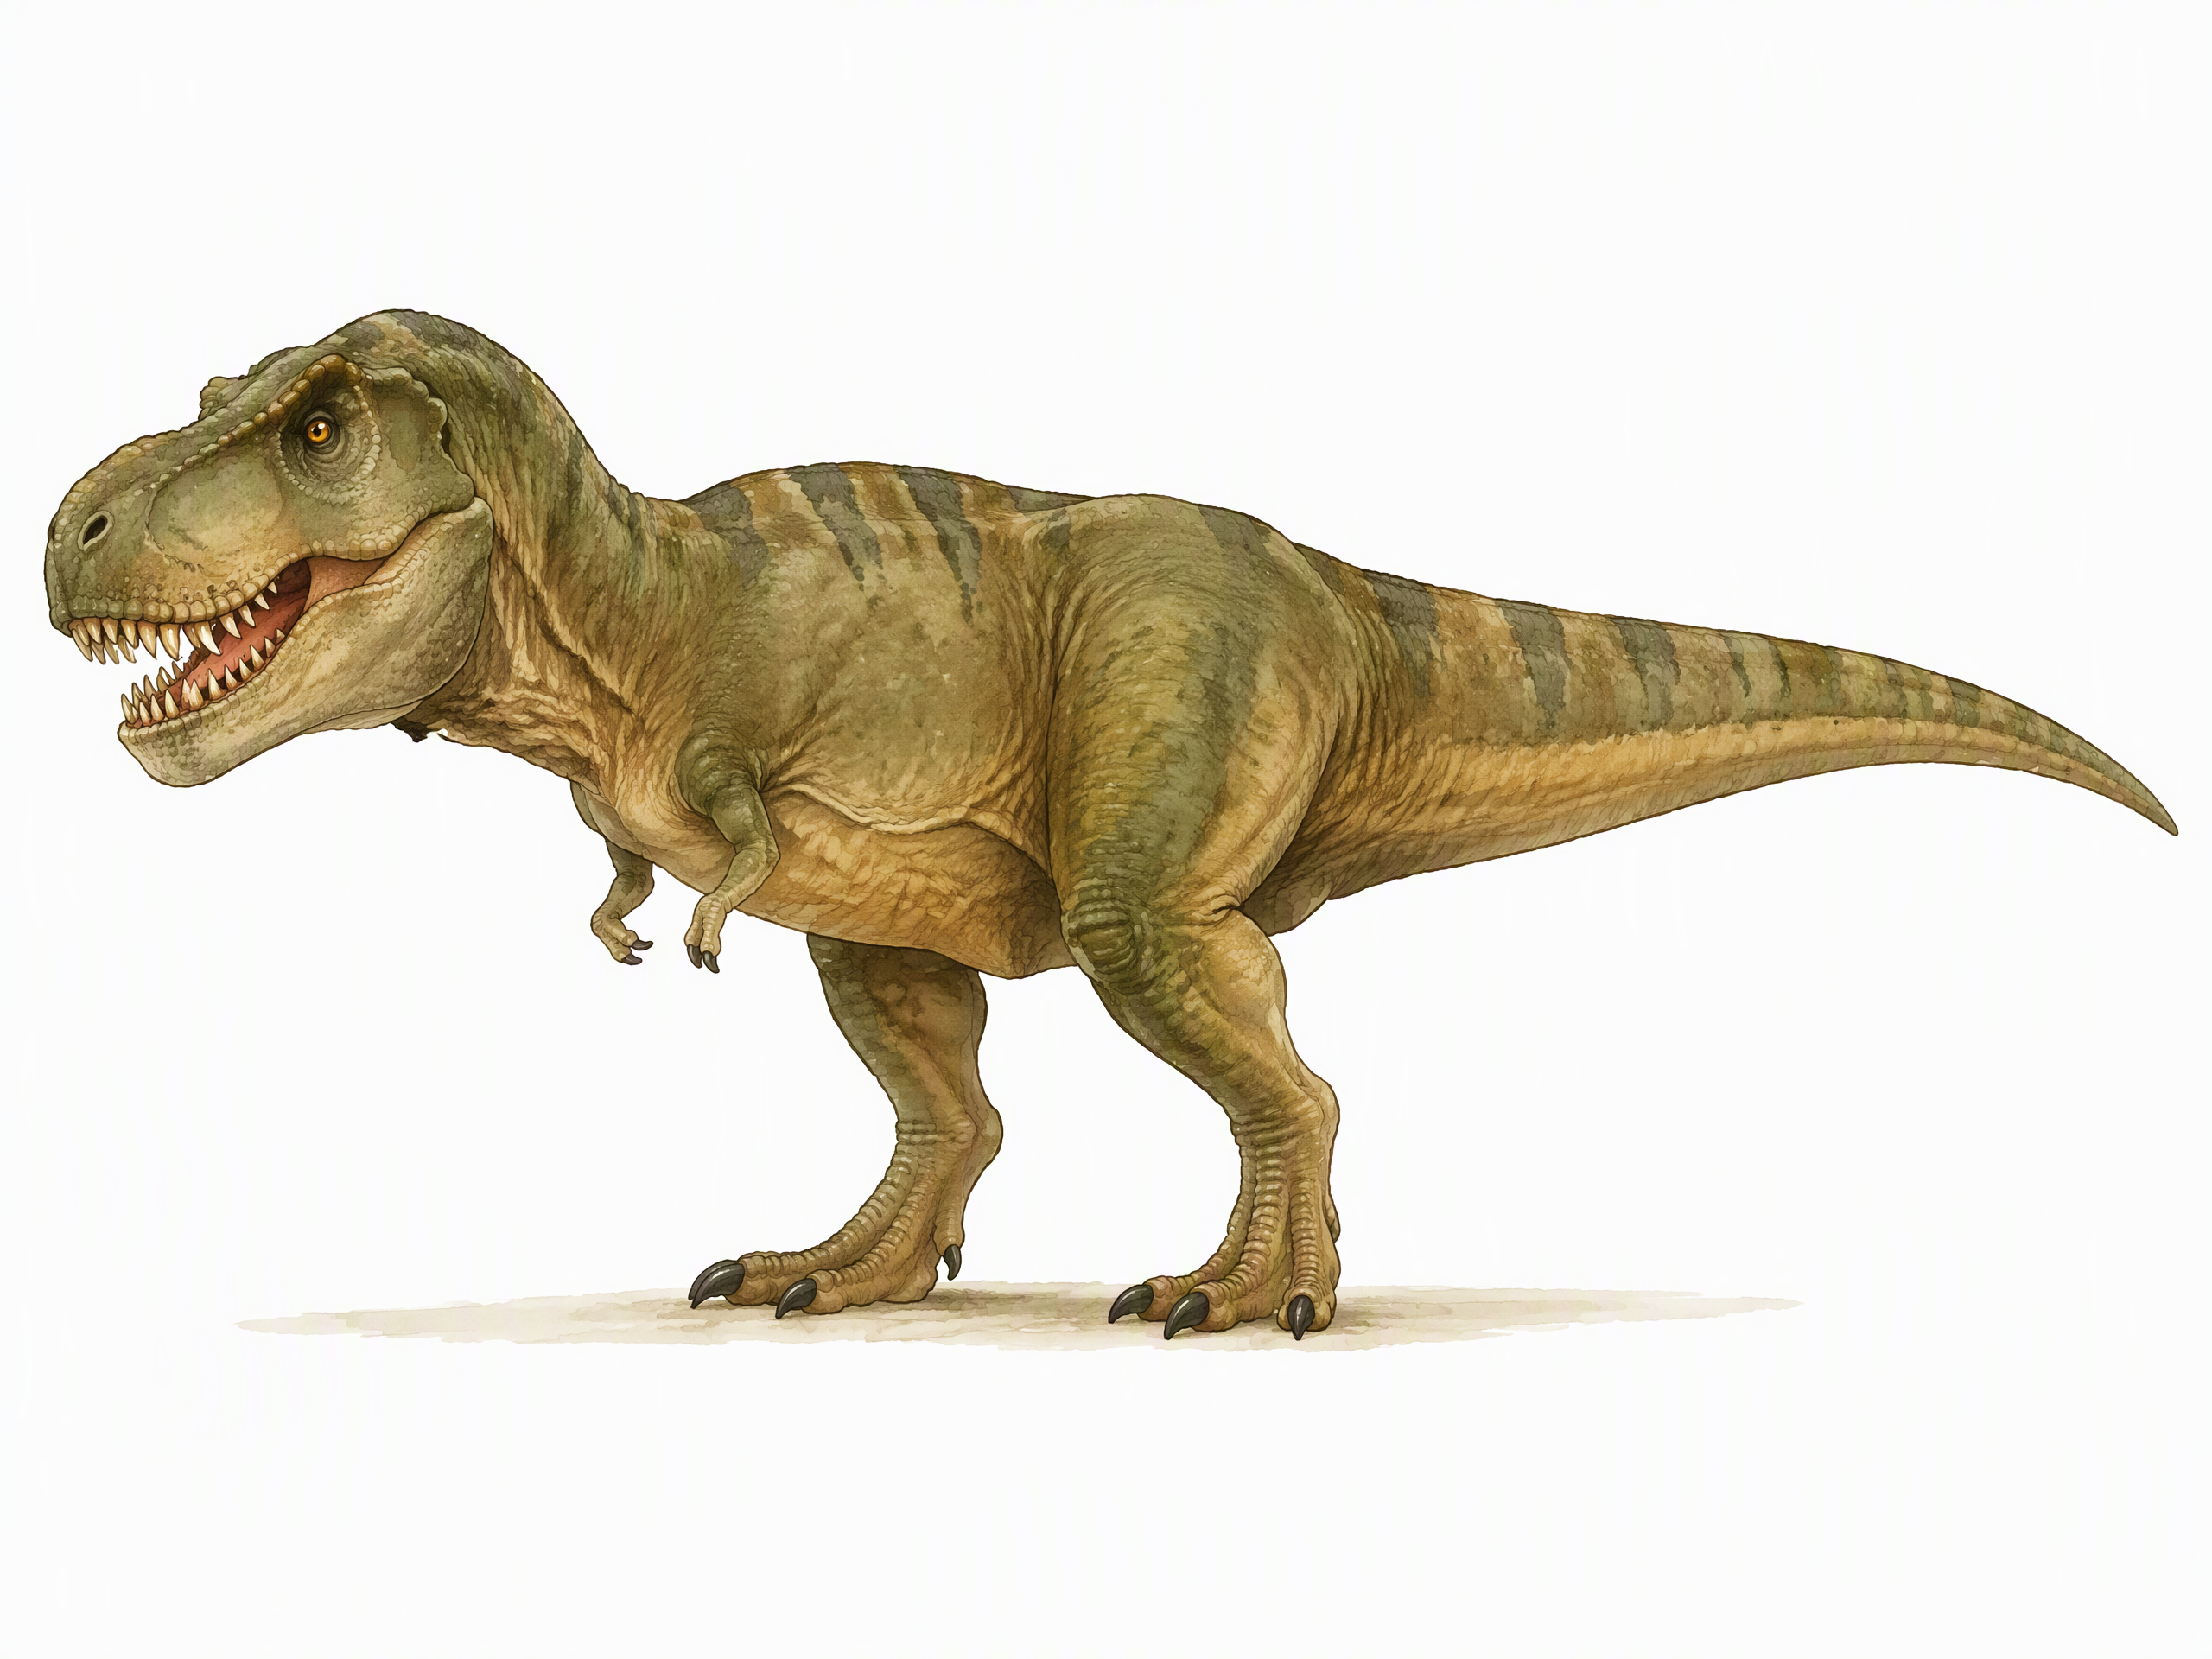
白垩纪末期北美大陆的顶级掠食者,体长约12.3米,体重约8.4-14吨。拥有已知陆地动物中最强的咬力(约6吨),能直接咬穿骨头。双目视觉立体感极好,嗅觉球比大脑还大。前肢虽小但力量惊人。最晚出现的大型肉食恐龙之一,存在时间仅约200万年。
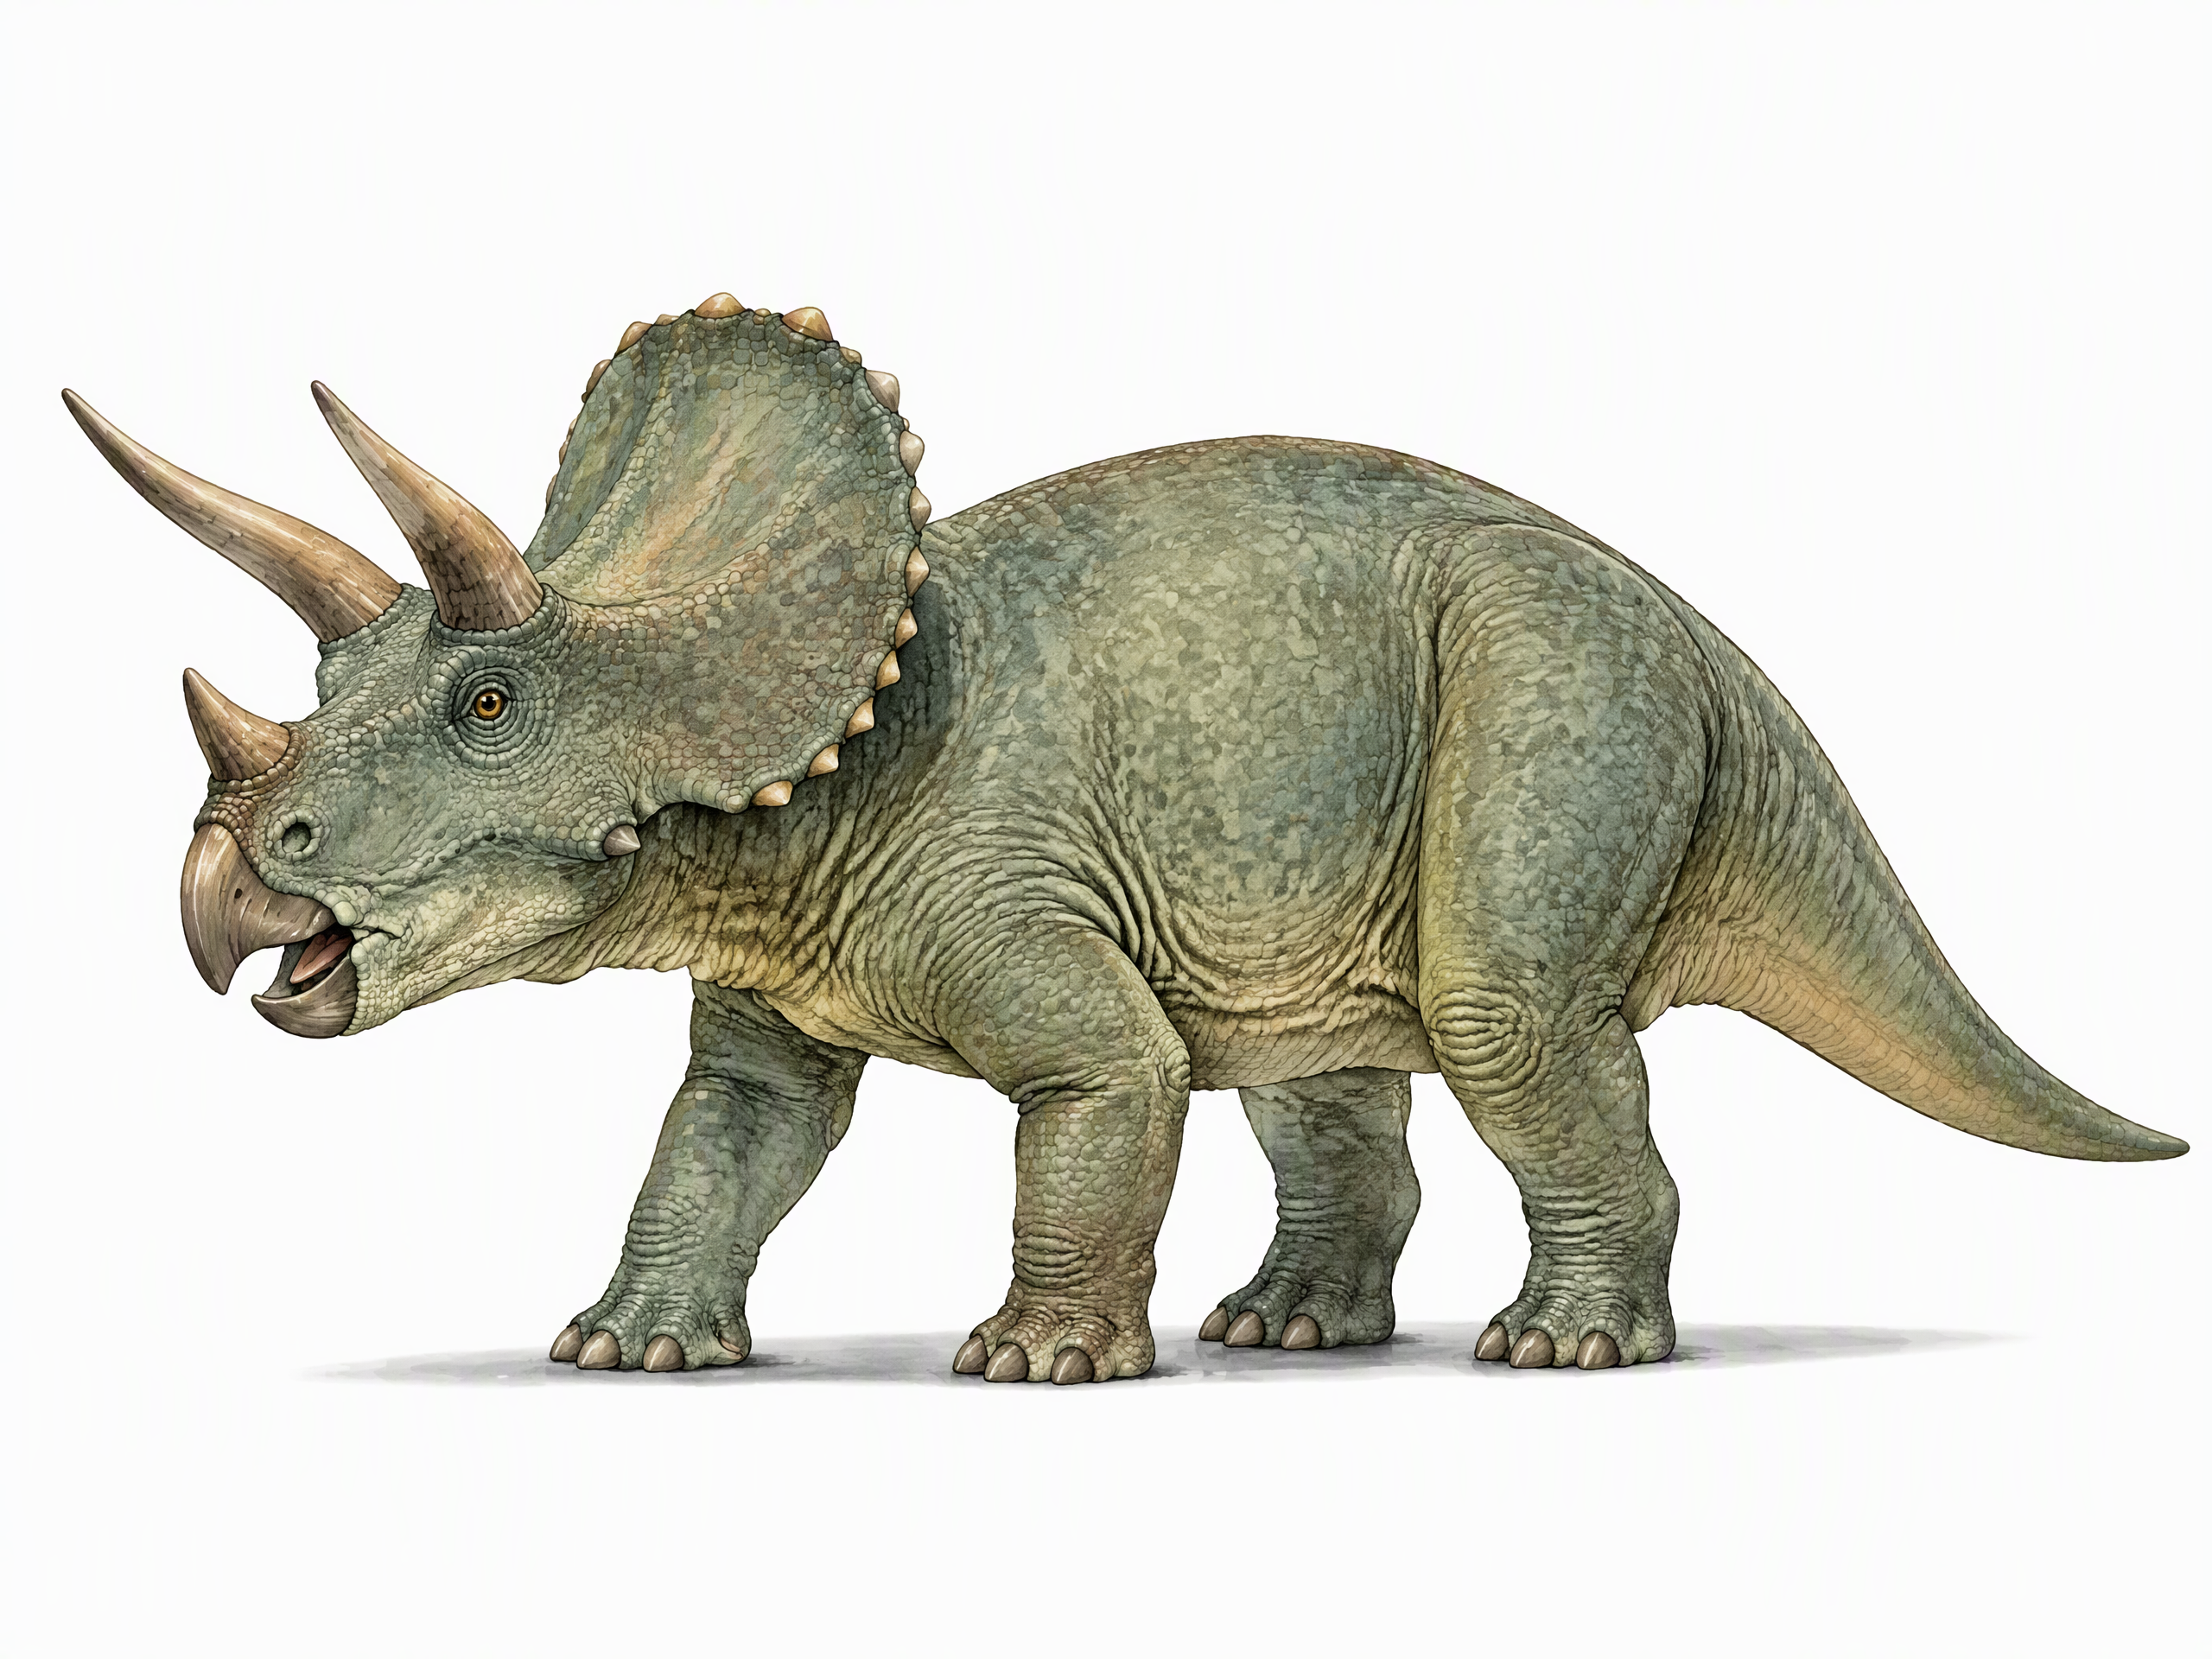
白垩纪末期最标志性的植食恐龙,体长约8-9米。头盾长达2米,三根角分别位于鼻部和两眉上方。咬力约1.2吨,能剪切坚韧的棕榈和蕨类。与霸王龙同期共存,化石上发现过霸王龙咬痕和三角龙角刺伤霸王龙的证据——堪称史前最伟大的对决之一。
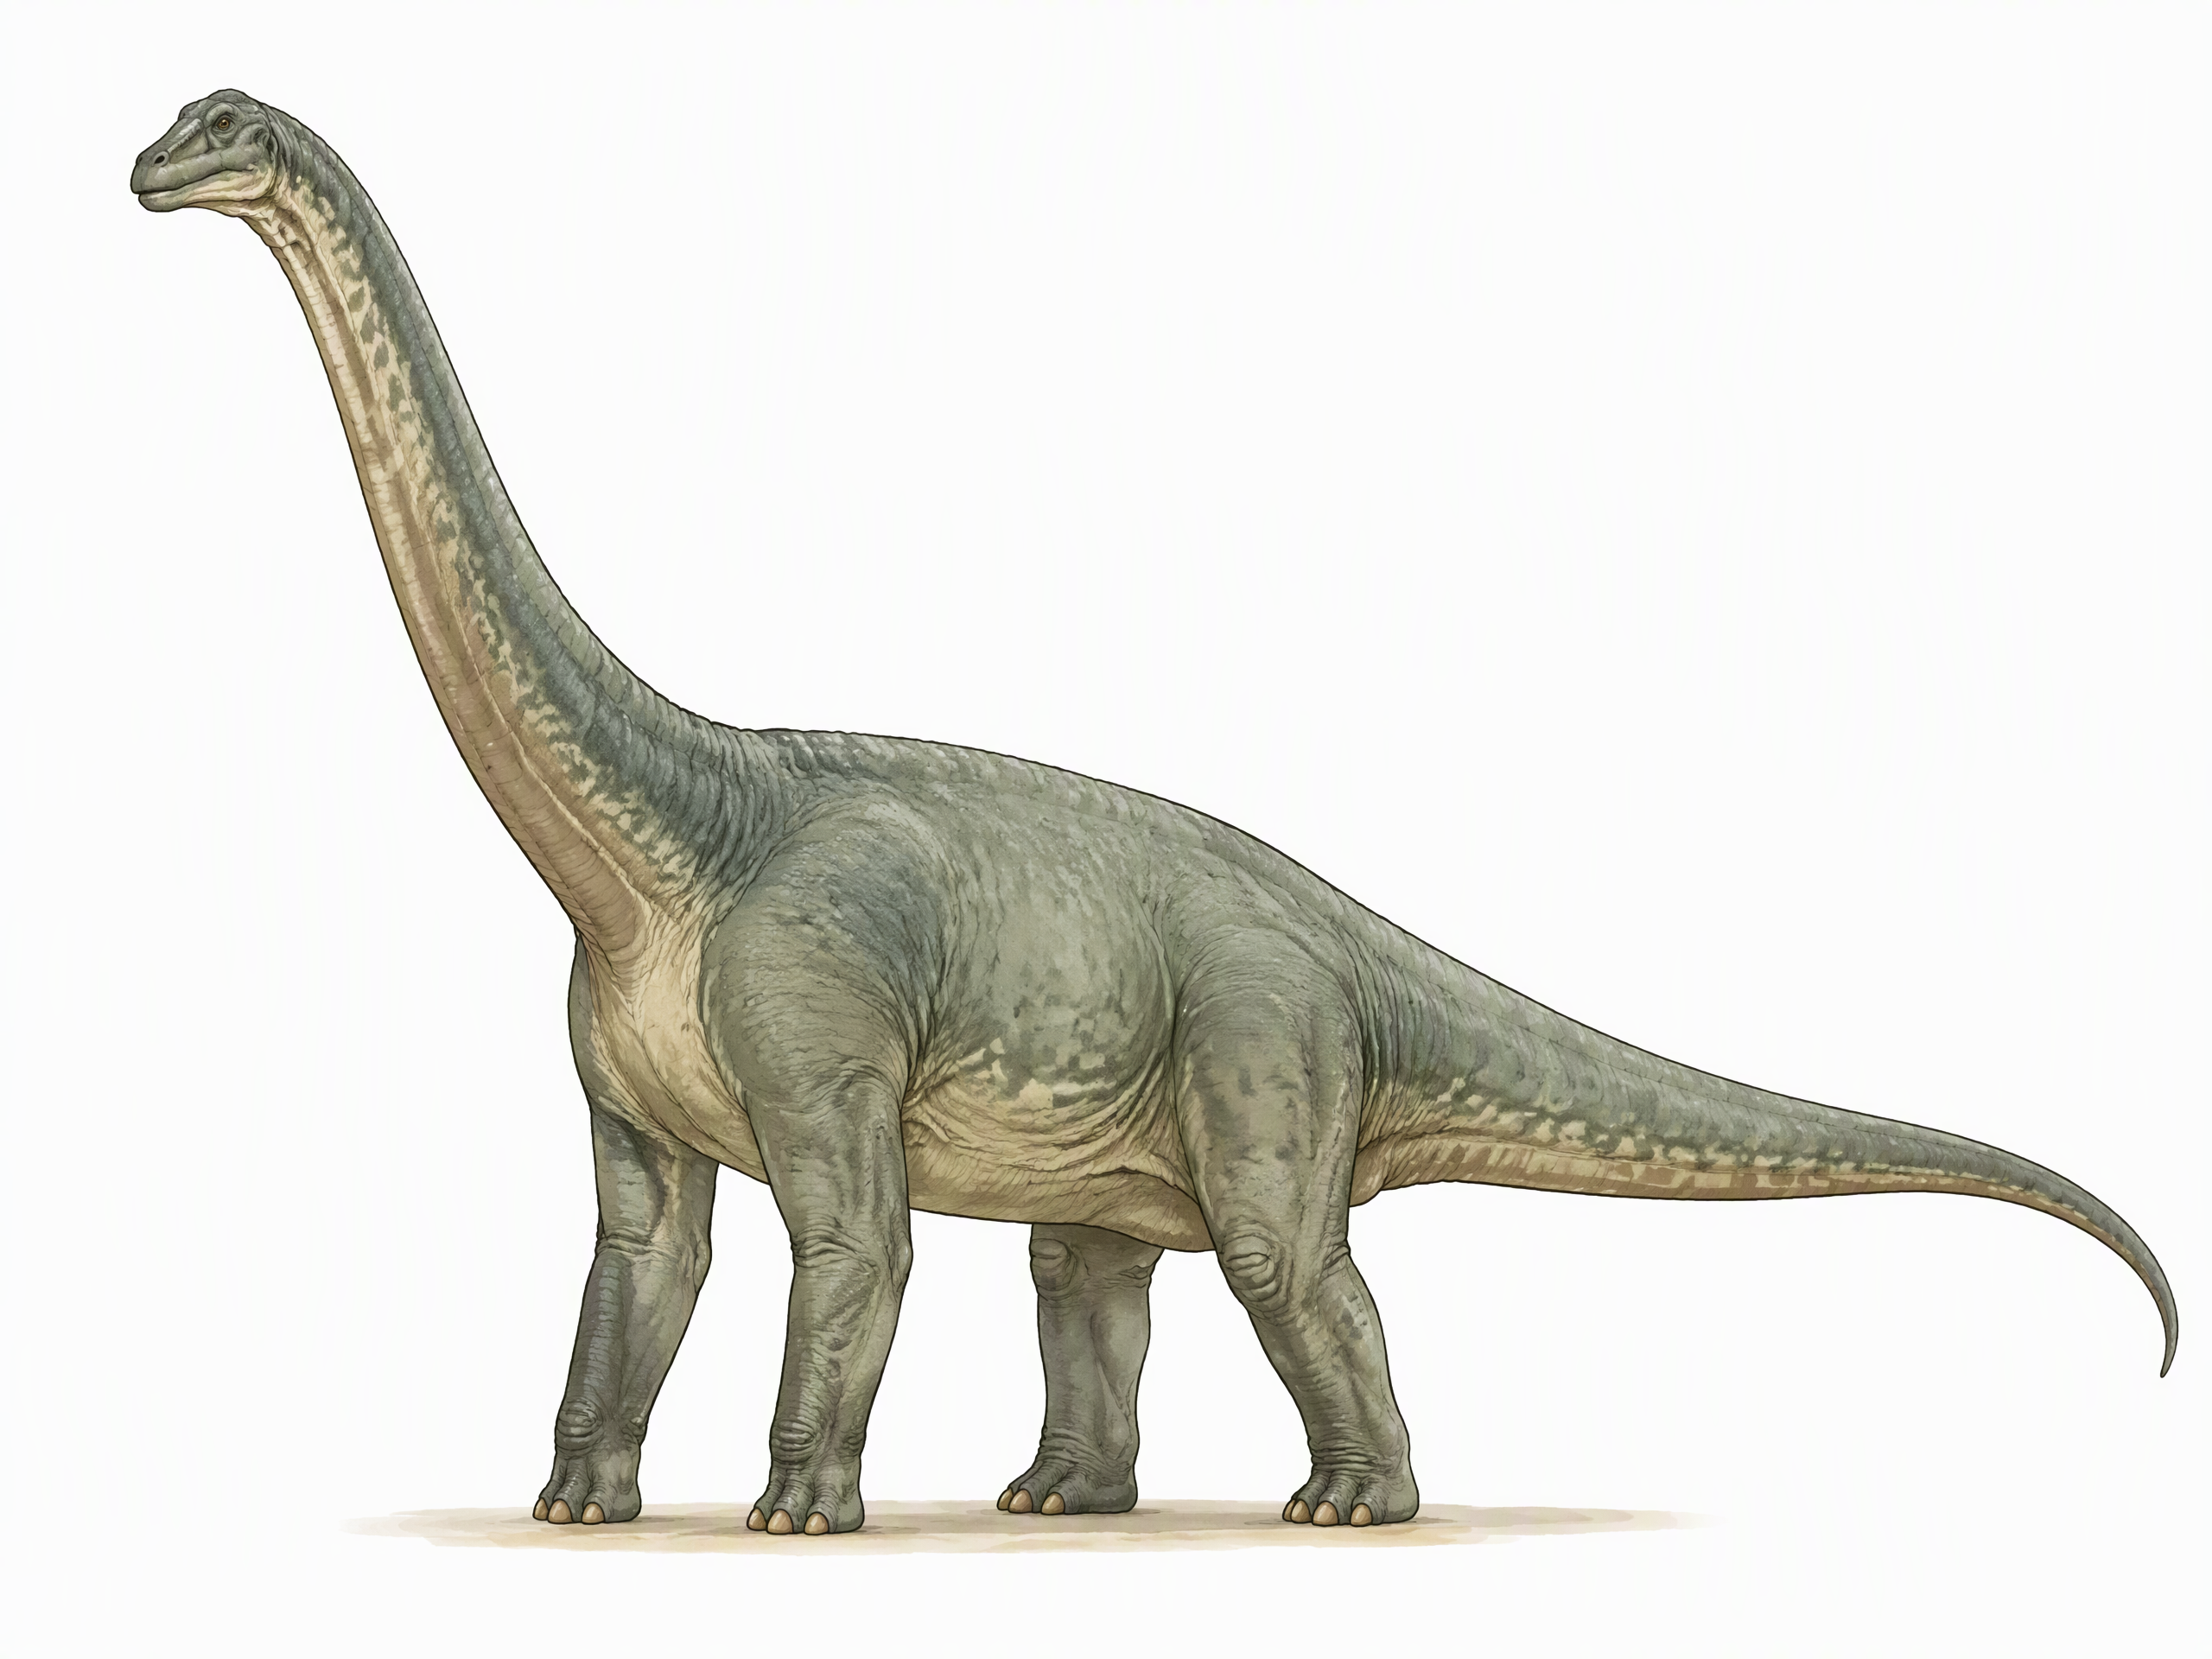
侏罗纪晚期标志性巨兽,前肢比后肢长,背部向上倾斜,像长颈鹿一样。头能举到约13米高——相当于四层楼。体重约30-80吨。与其他蜥脚类不同,腕龙的身体结构暗示它可能像长颈鹿一样取食高处树叶,而非横扫两侧。曾被误认为需要生活在水中来支撑体重,现已纠正。
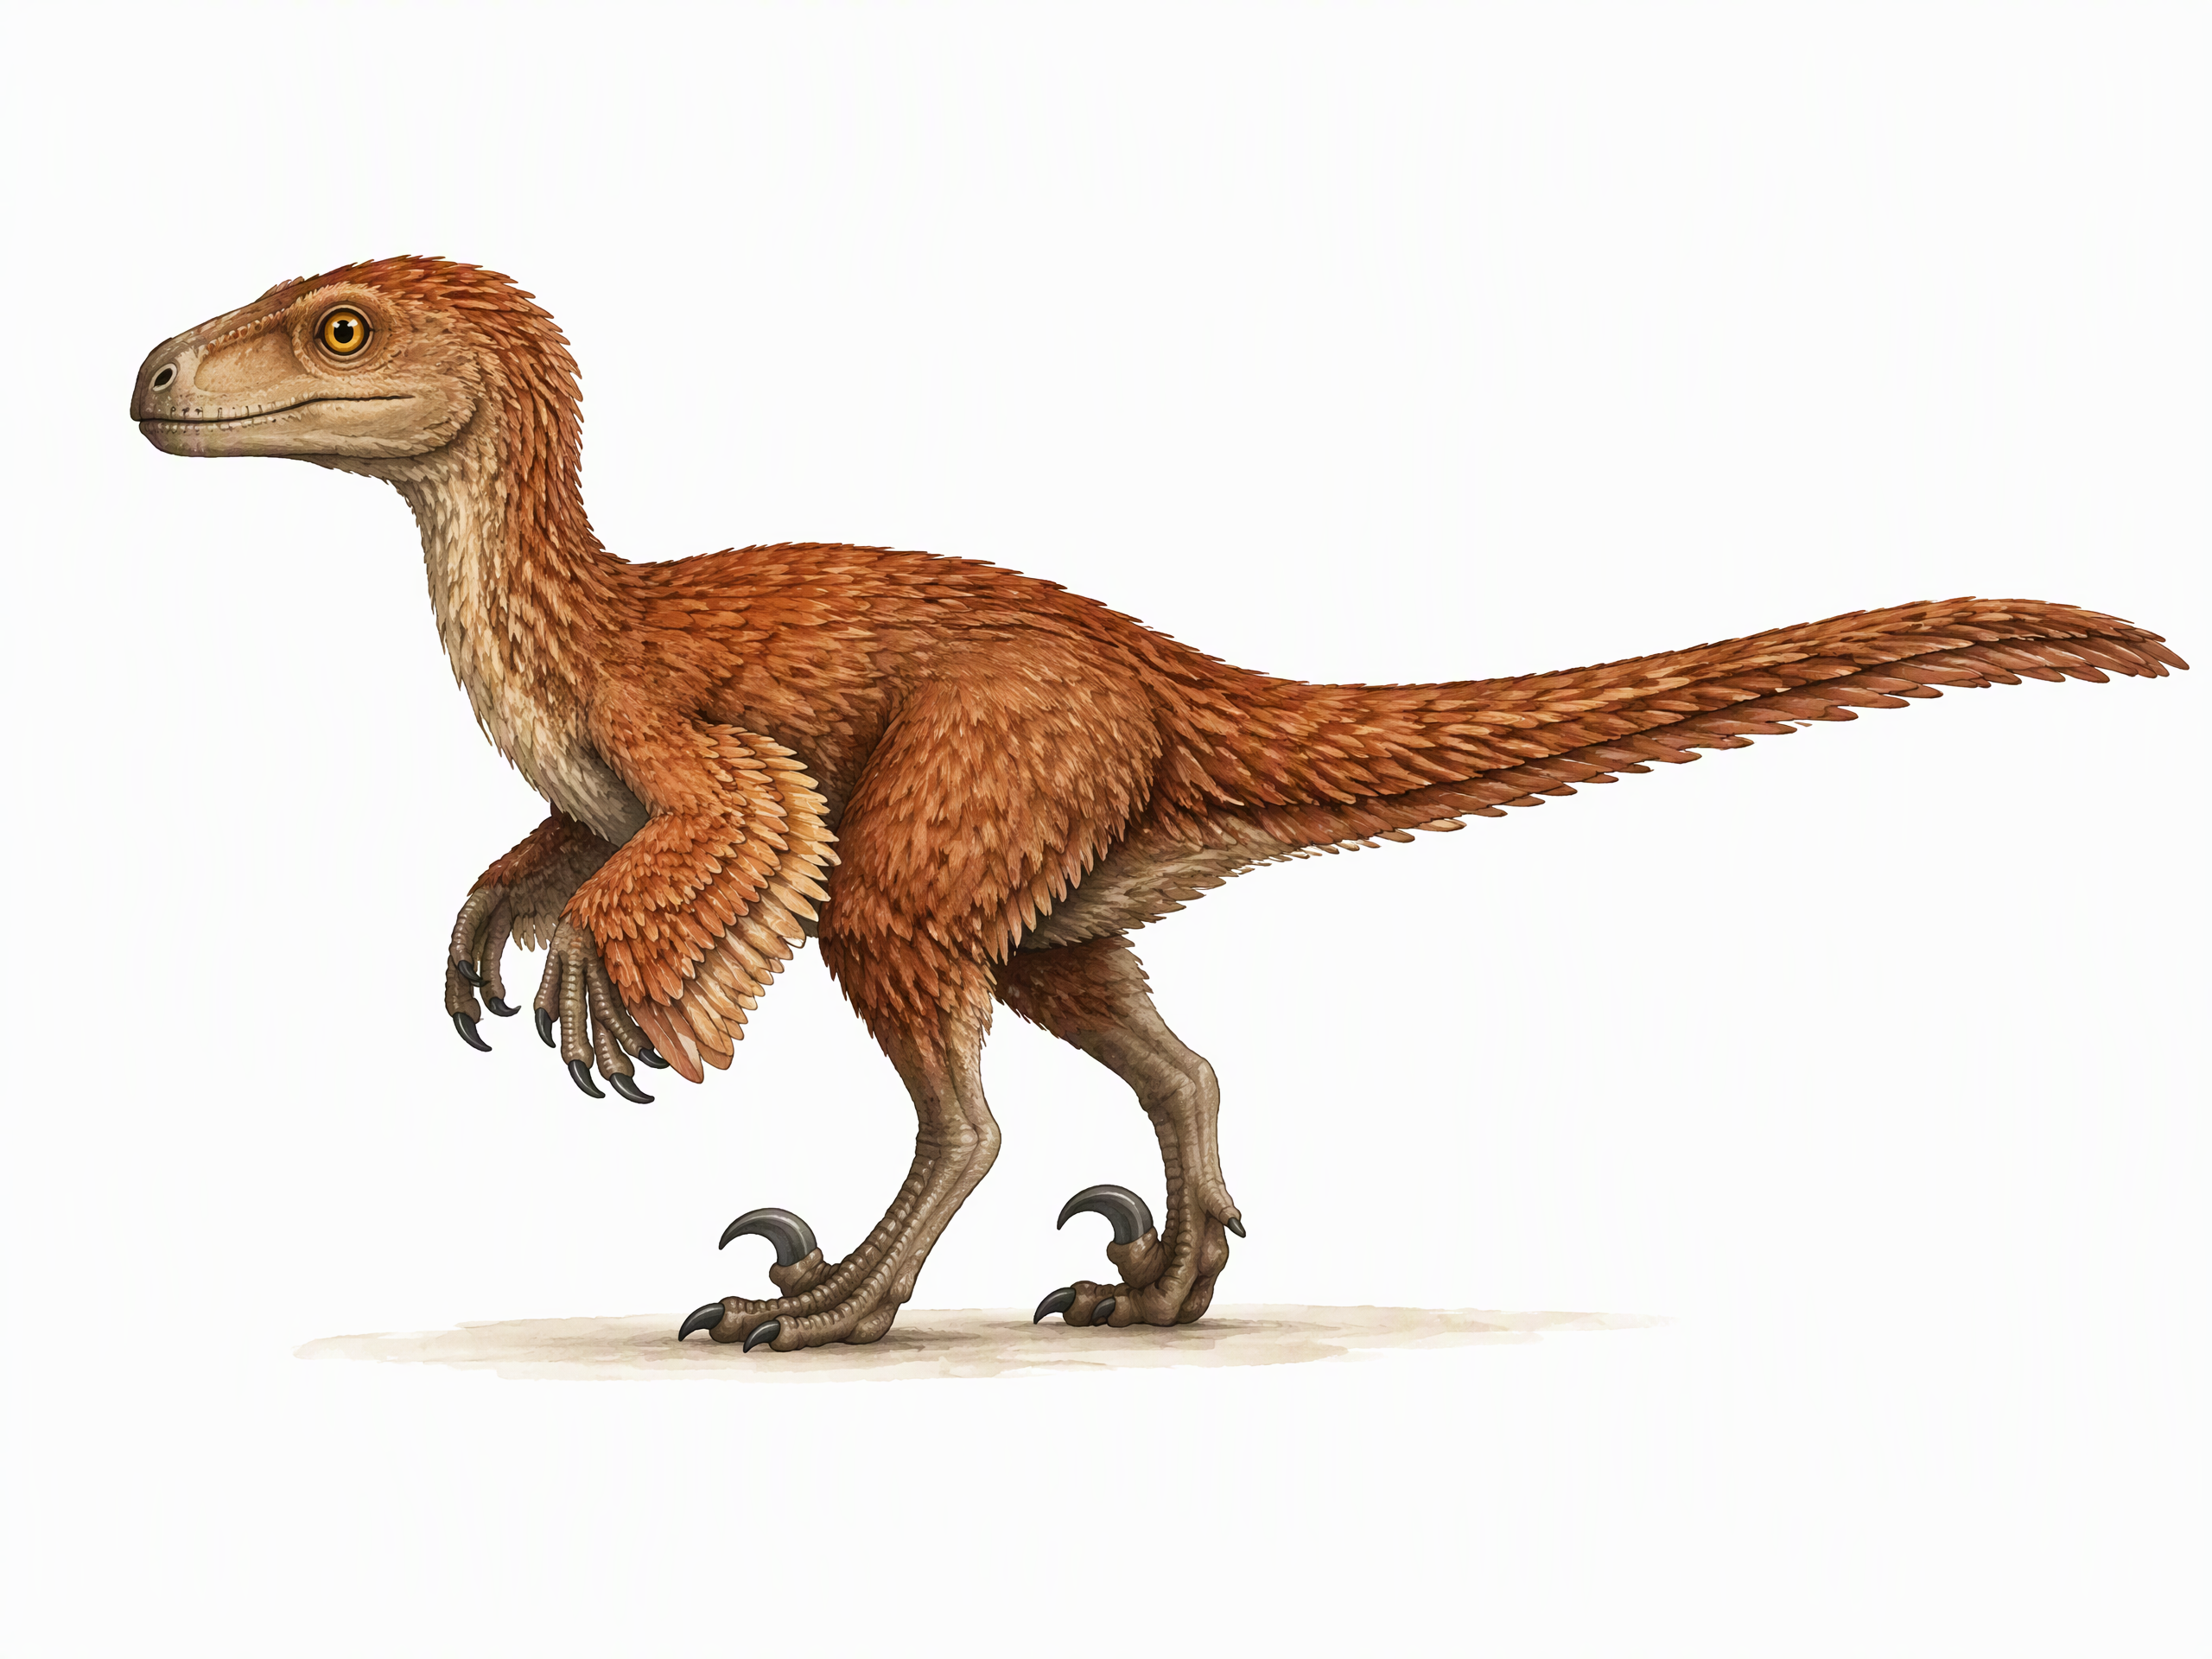
体长约2米,体重约15公斤,火鸡大小。电影《侏罗纪公园》将其放大了三倍,实际体型并不大。但确实是凶猛的捕食者——脚趾第二趾有弯曲的"镰刀爪"长达6.5厘米。化石发现它有羽毛,脑容量大,推测智商较高。著名的"原角龙与迅猛龙搏斗"化石定格了它们的战斗瞬间。
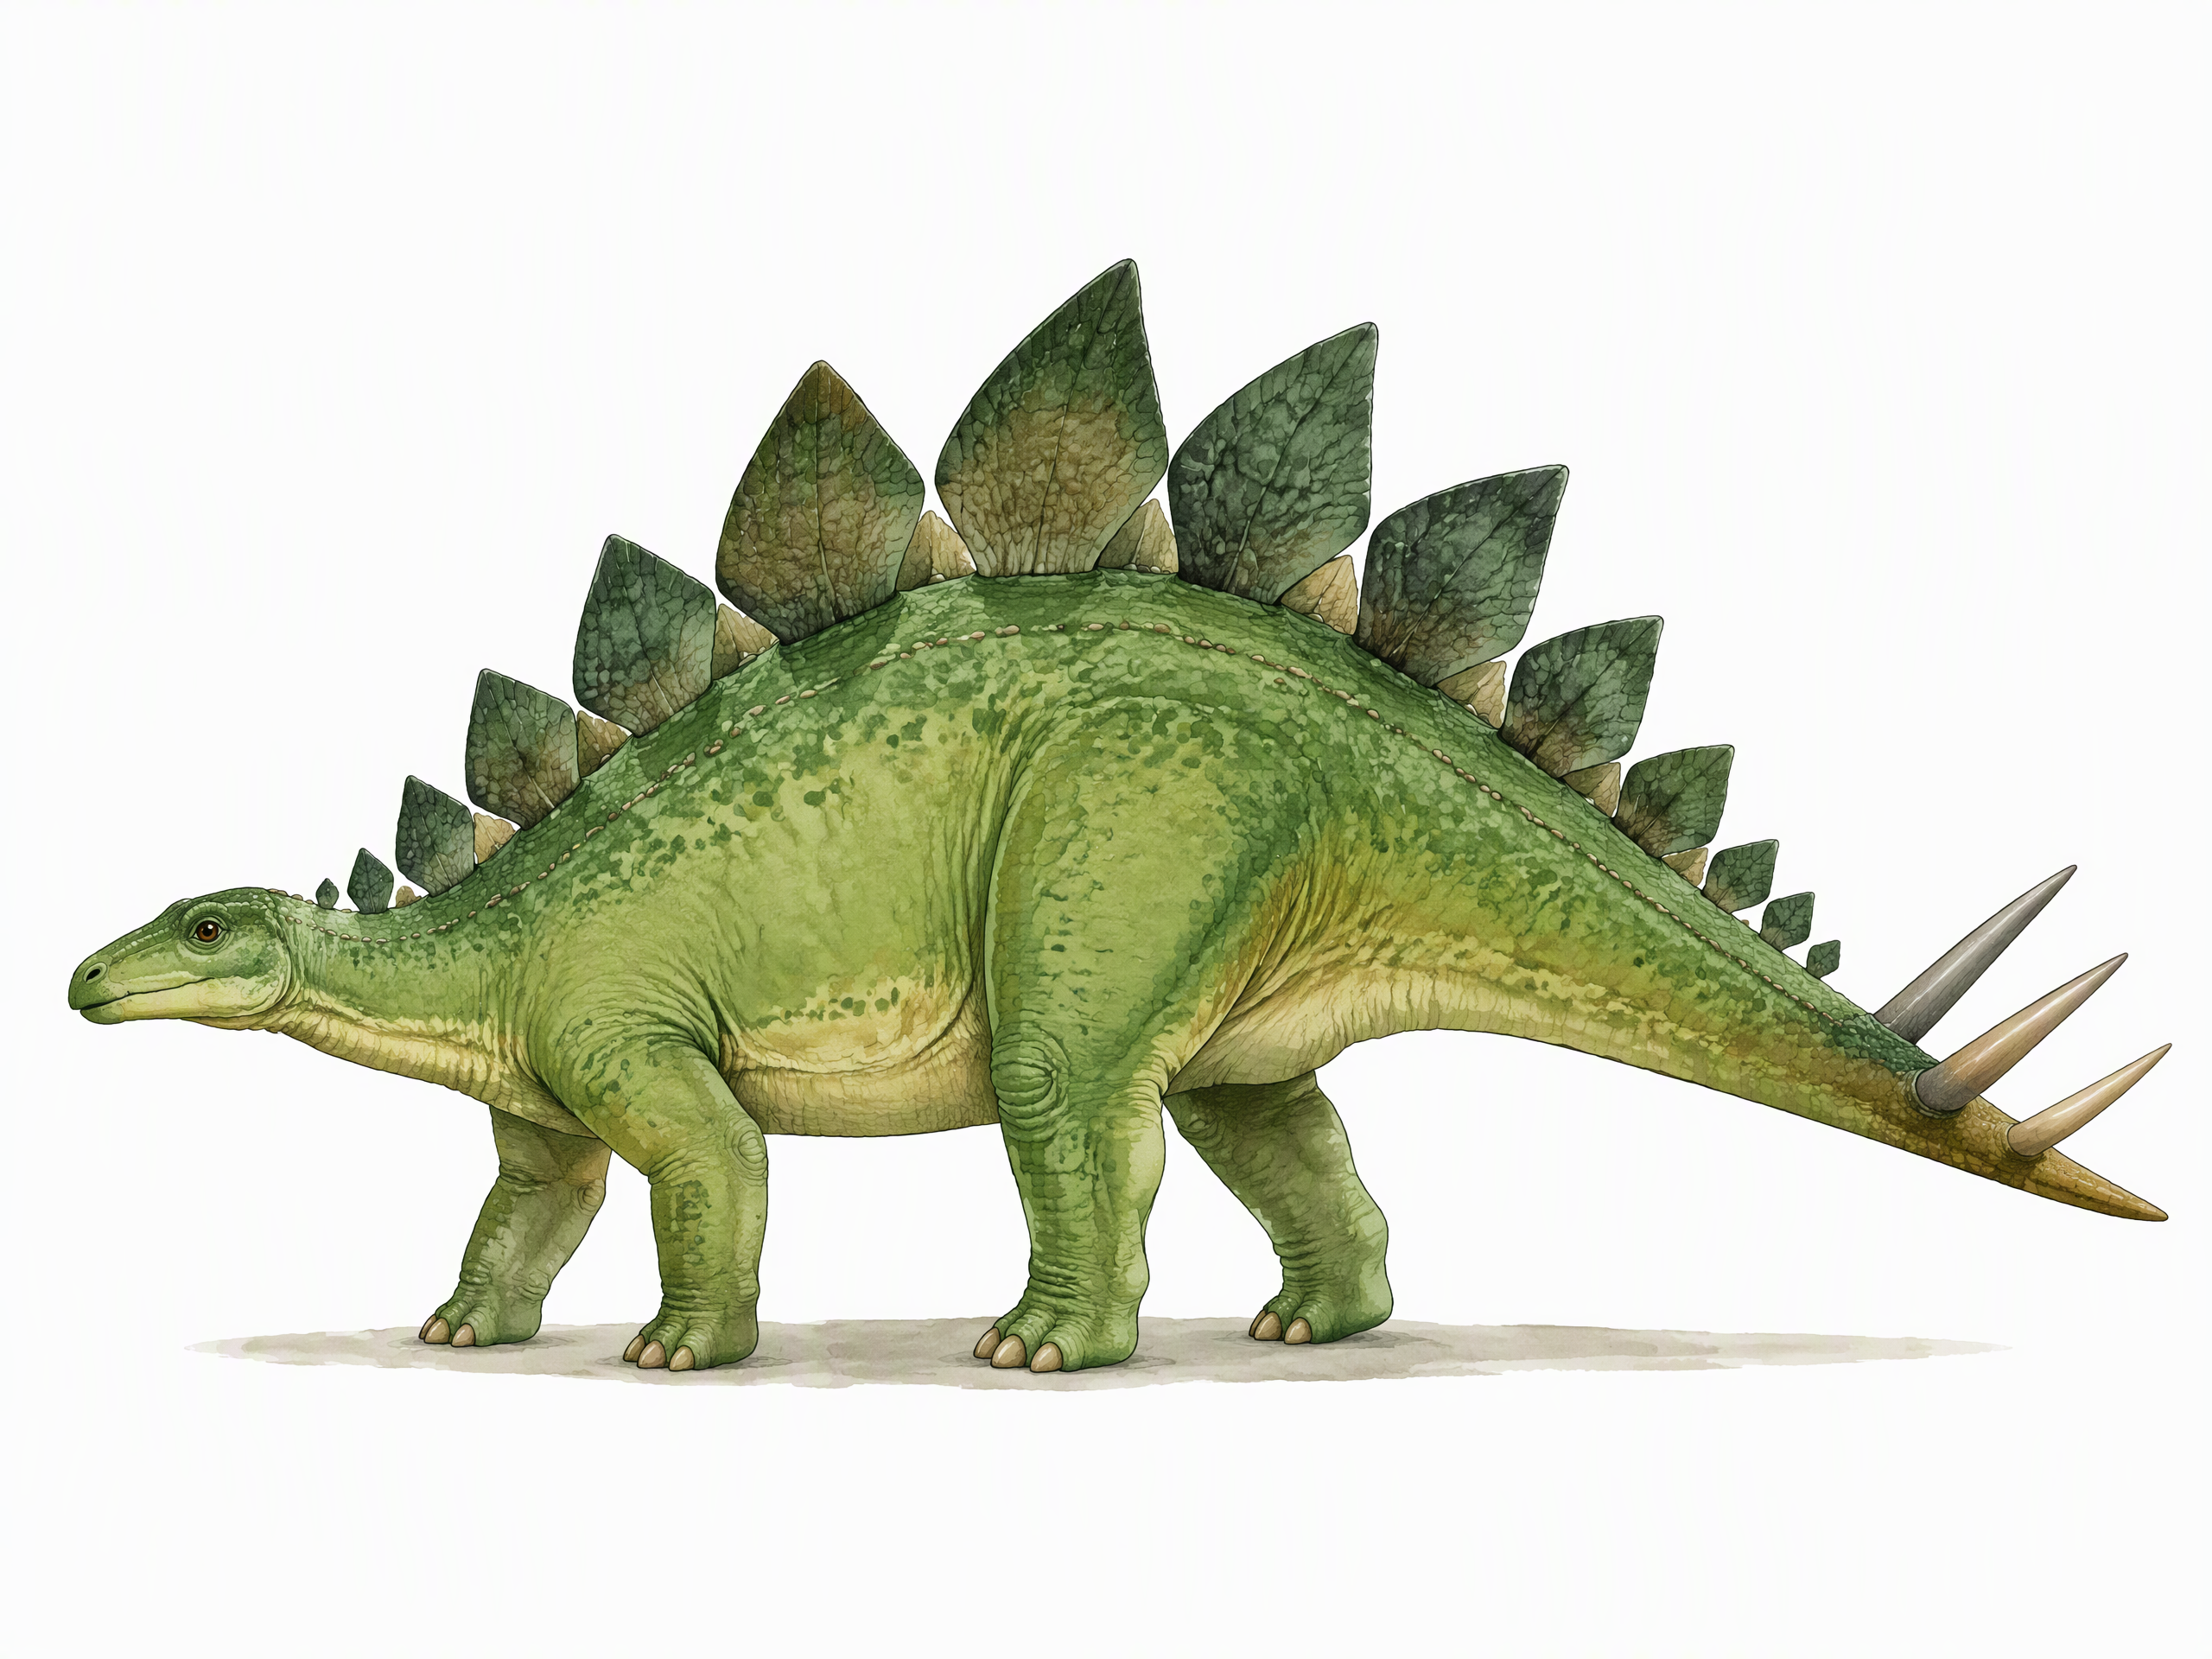
侏罗纪晚期最具辨识度的恐龙,背部有两排交替排列的大骨板(最大可达60厘米高)。骨板可能用于体温调节、展示或威慑。尾巴末端有四根长达1米的尾刺——这是它的主要武器。脑容量异常小(仅80克,核桃大小),但并不代表它蠢——小型脑足以控制其简单行为。
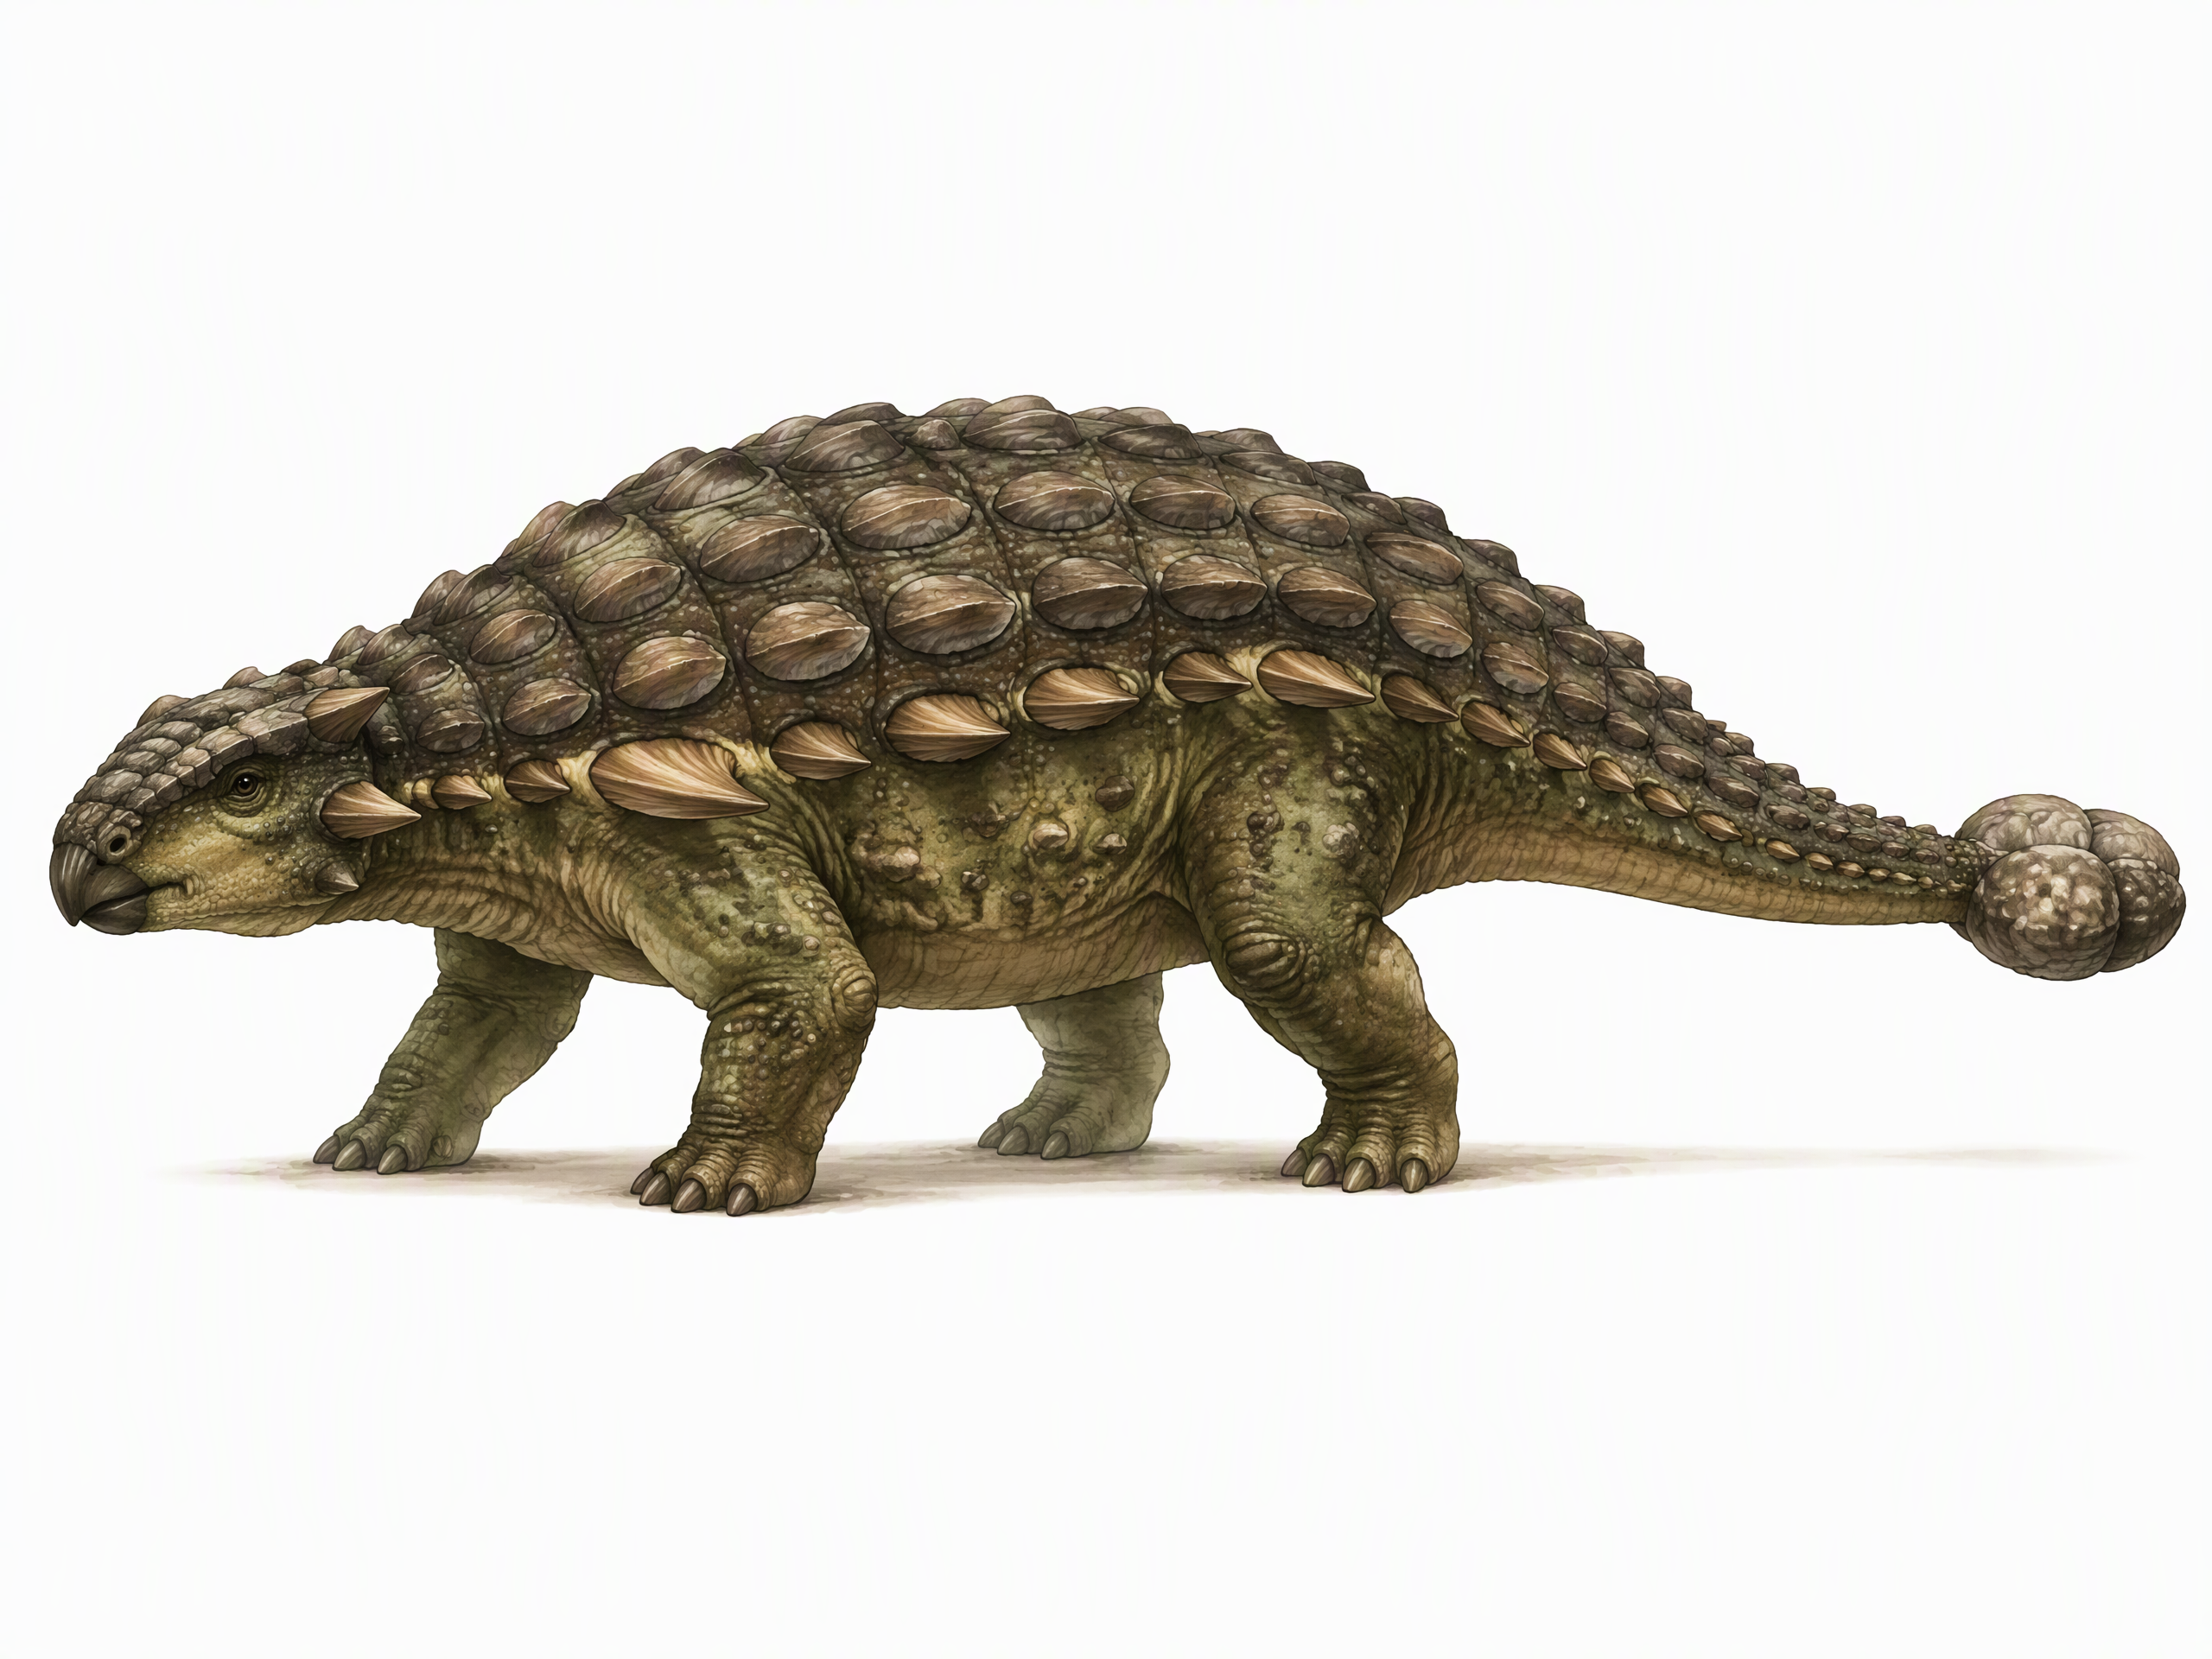
白垩纪末期"活坦克"。全身覆盖厚骨甲板,连眼睑都有骨质装甲。尾巴末端有直径约50厘米的骨锤,挥击力可达数吨——足以打断霸王龙的腿。体长约8-10米,重约6吨。面对霸王龙进攻,甲龙几乎是"最强防御型"植食恐龙。
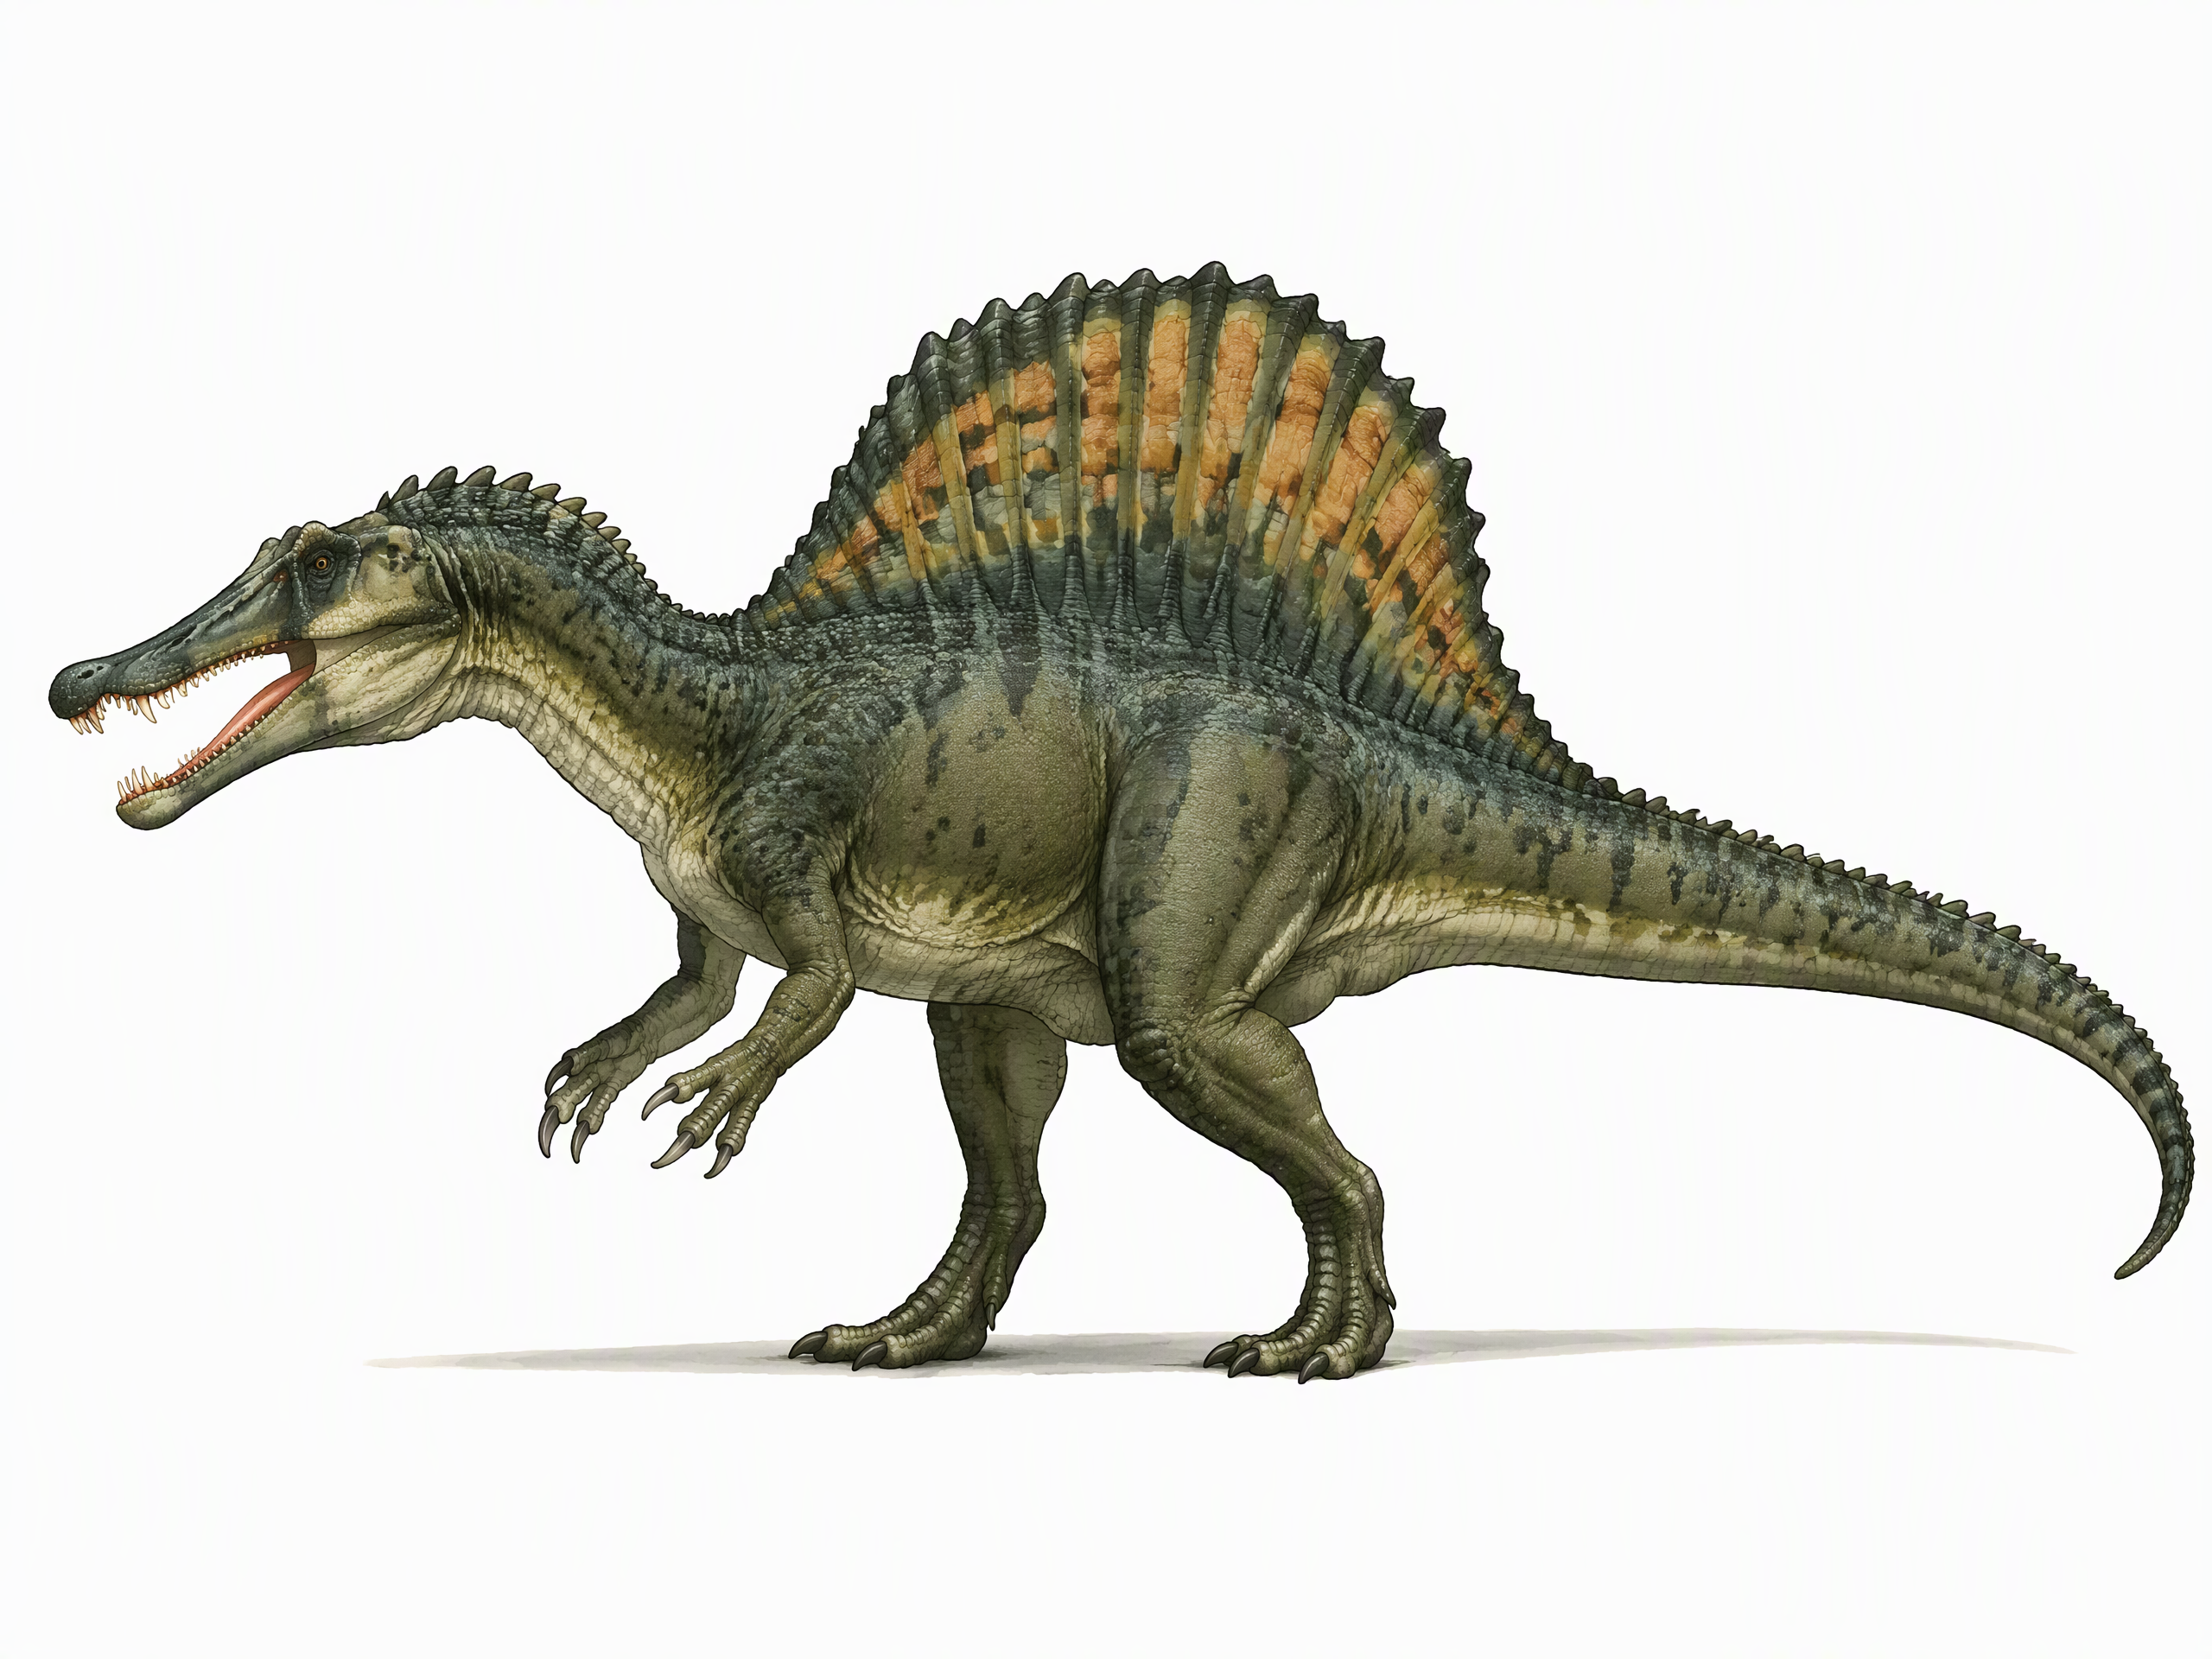
已知最长的肉食恐龙,体长约14-18米。背上有高达1.8米的"帆",由脊椎骨延伸的神经棘支撑。最新研究表明棘龙是半水生的——圆锥形牙齿适合捕鱼,尾鳍状尾部提供水中推力,鼻孔靠后便于半潜。可能主要在河流中捕食大型鱼类,而非陆地猎食。
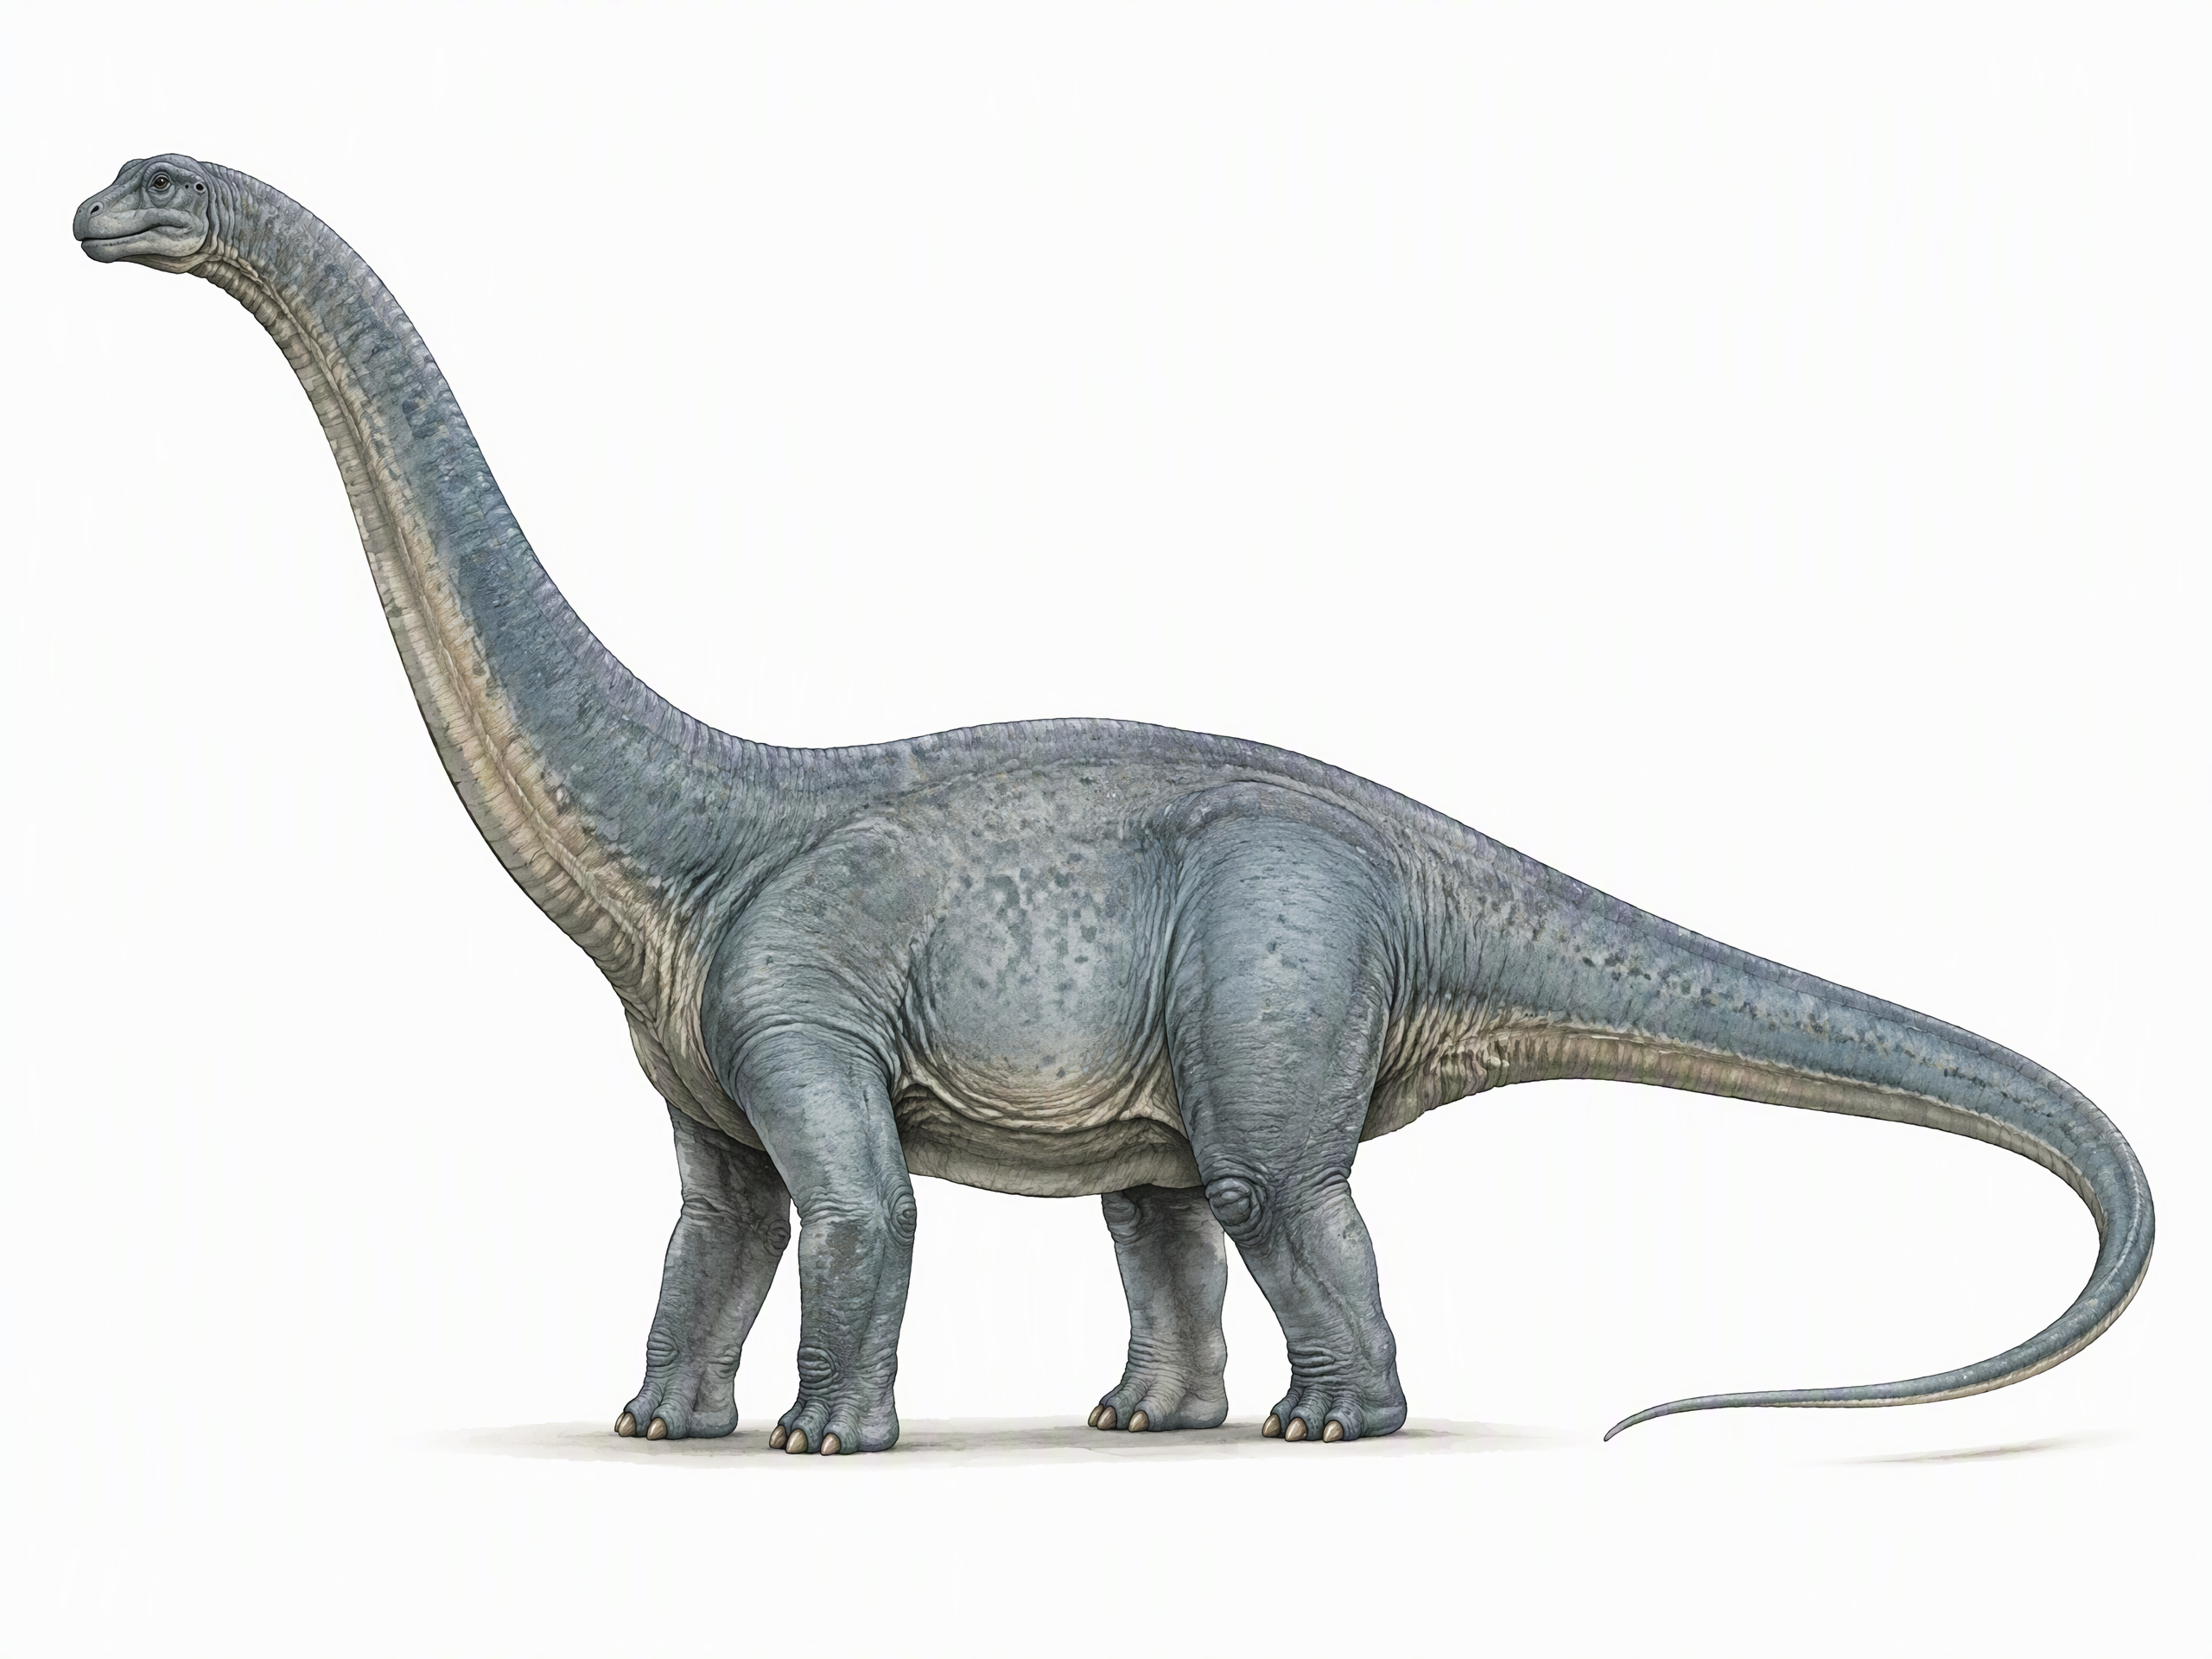
侏罗纪末期最著名的长脖子巨兽。体长约22米,体重约17-22吨。曾因学术分类争议被并入迷惑龙属(Apatosaurus),2015年研究又恢复了雷龙属的有效性。尾巴像鞭子一样极细长,末端甩动时可能产生音爆。早期复原常把头放错成圆顶龙的头,后来纠正。
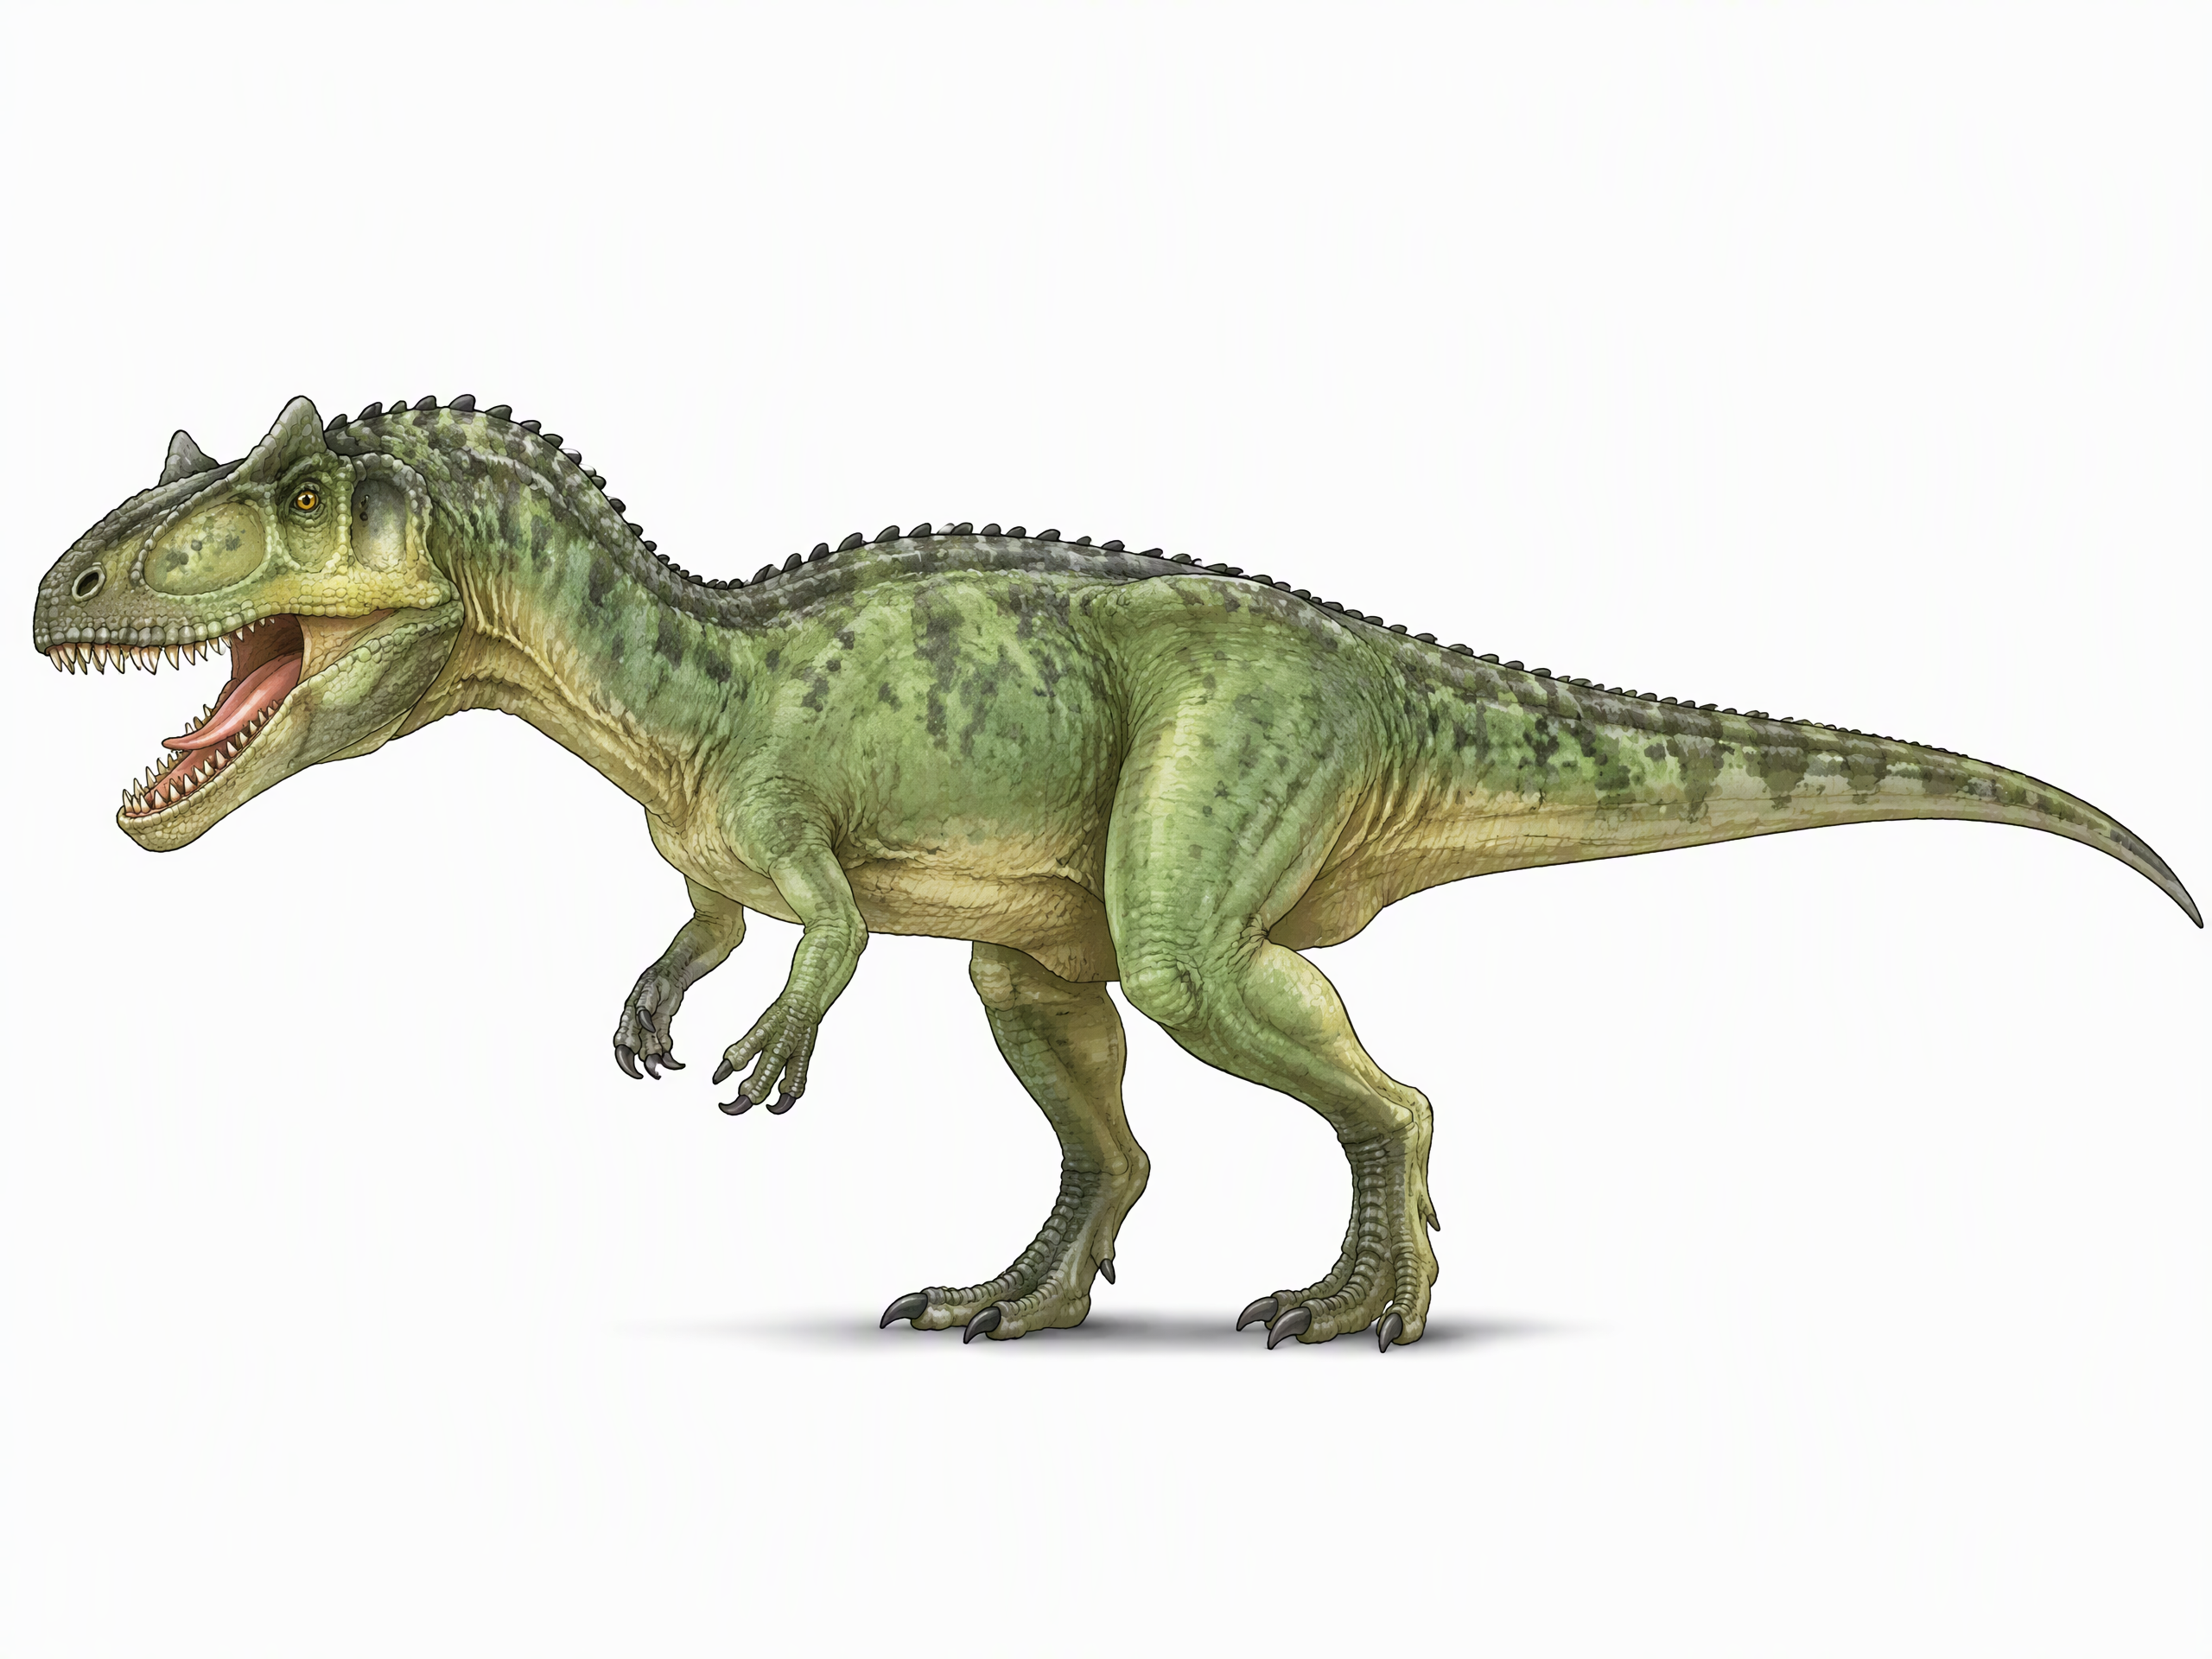
侏罗纪晚期北美大陆的顶级掠食者,体长约8-9米。比霸王龙早了8000万年,但同样是凶猛的"狮王"角色。头骨轻巧但有力,颌部可张大到约80度,配合锯齿刀片状牙齿,采取"slash-and-tear"攻击策略——快速咬切而非碾压。化石数量极多,说明它是当时的优势物种。
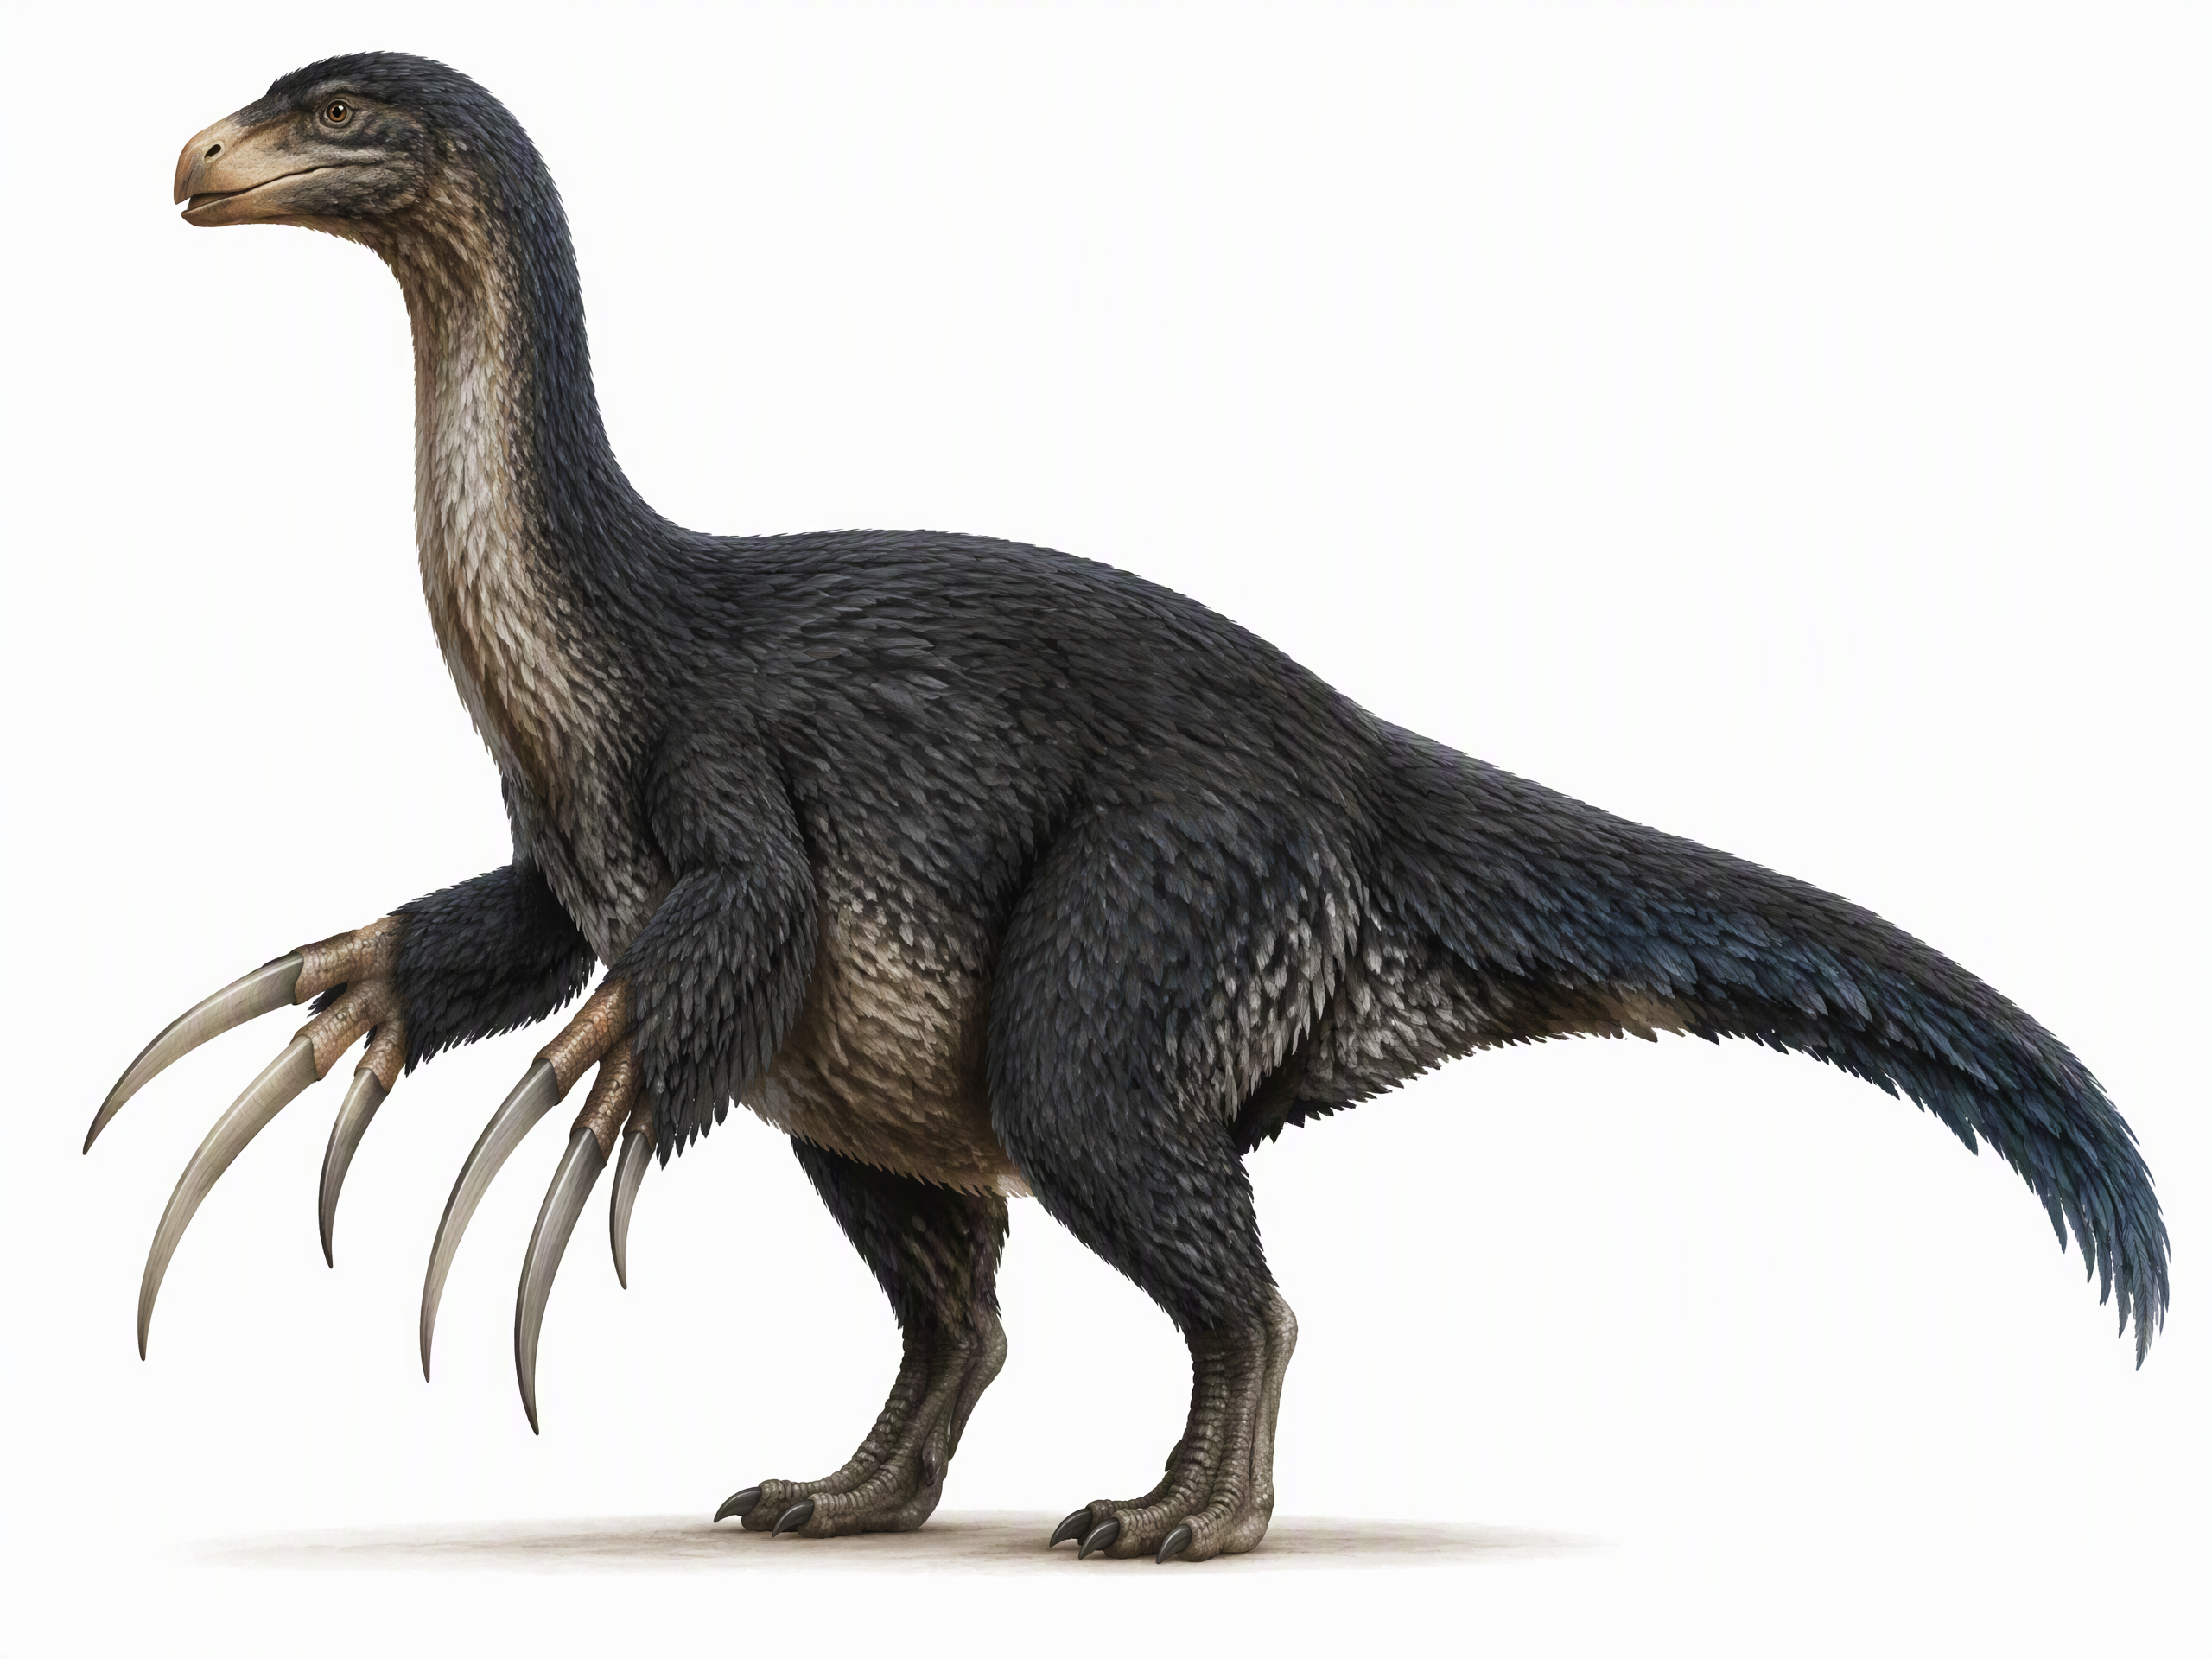
恐龙界最"魔幻"的存在。属于兽脚类(通常是肉食),却是植食的。前爪上有长达70-90厘米的爪子——比任何已知动物都长。体长约10米,全身可能覆盖绒毛。爪子可能用于够取高处树枝、防御或求偶展示。它的发现一度让古生物学家以为是巨型海龟的化石。
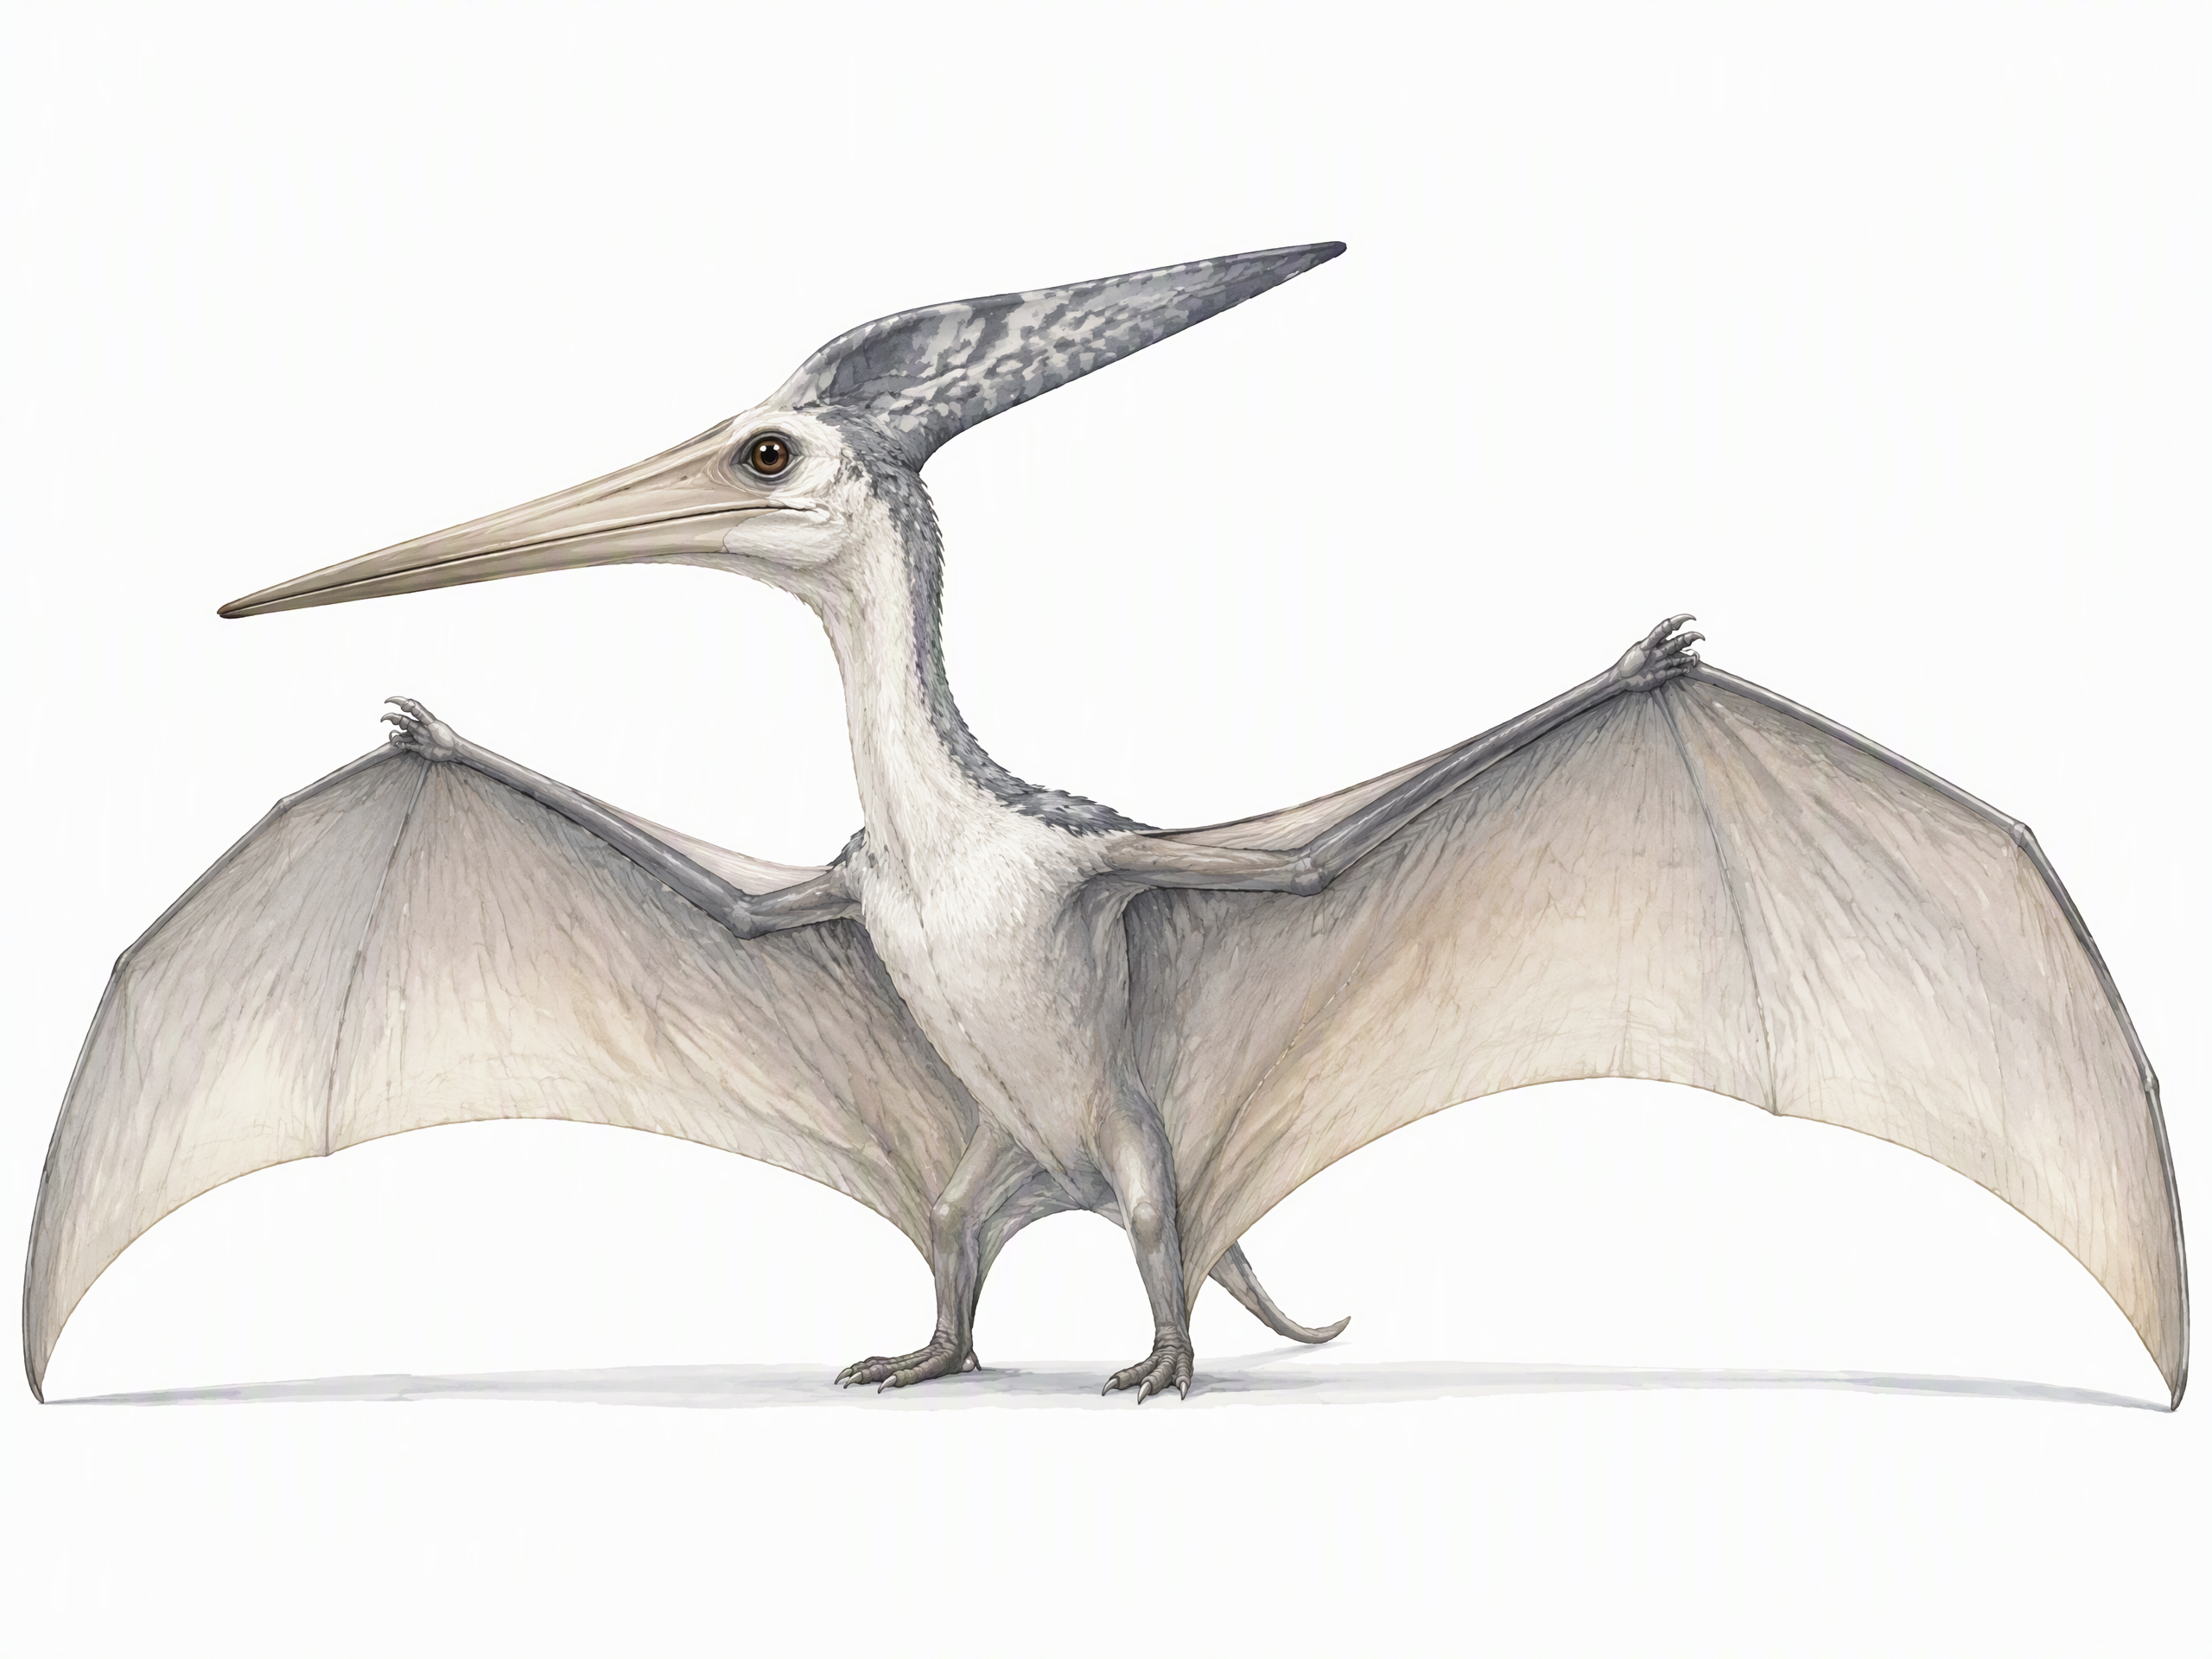
严格来说翼龙不是恐龙,而是与恐龙同时代的主龙类近亲。无齿翼龙翼展约7米,是有记录以来最大的飞行动物之一(风神翼龙更大,翼展可达10米以上)。靠热气流滑翔,以鱼为食。头后方有长长的骨质冠饰,可能用于方向舵或性展示。骨骼中空极轻,仅约1-2公斤。
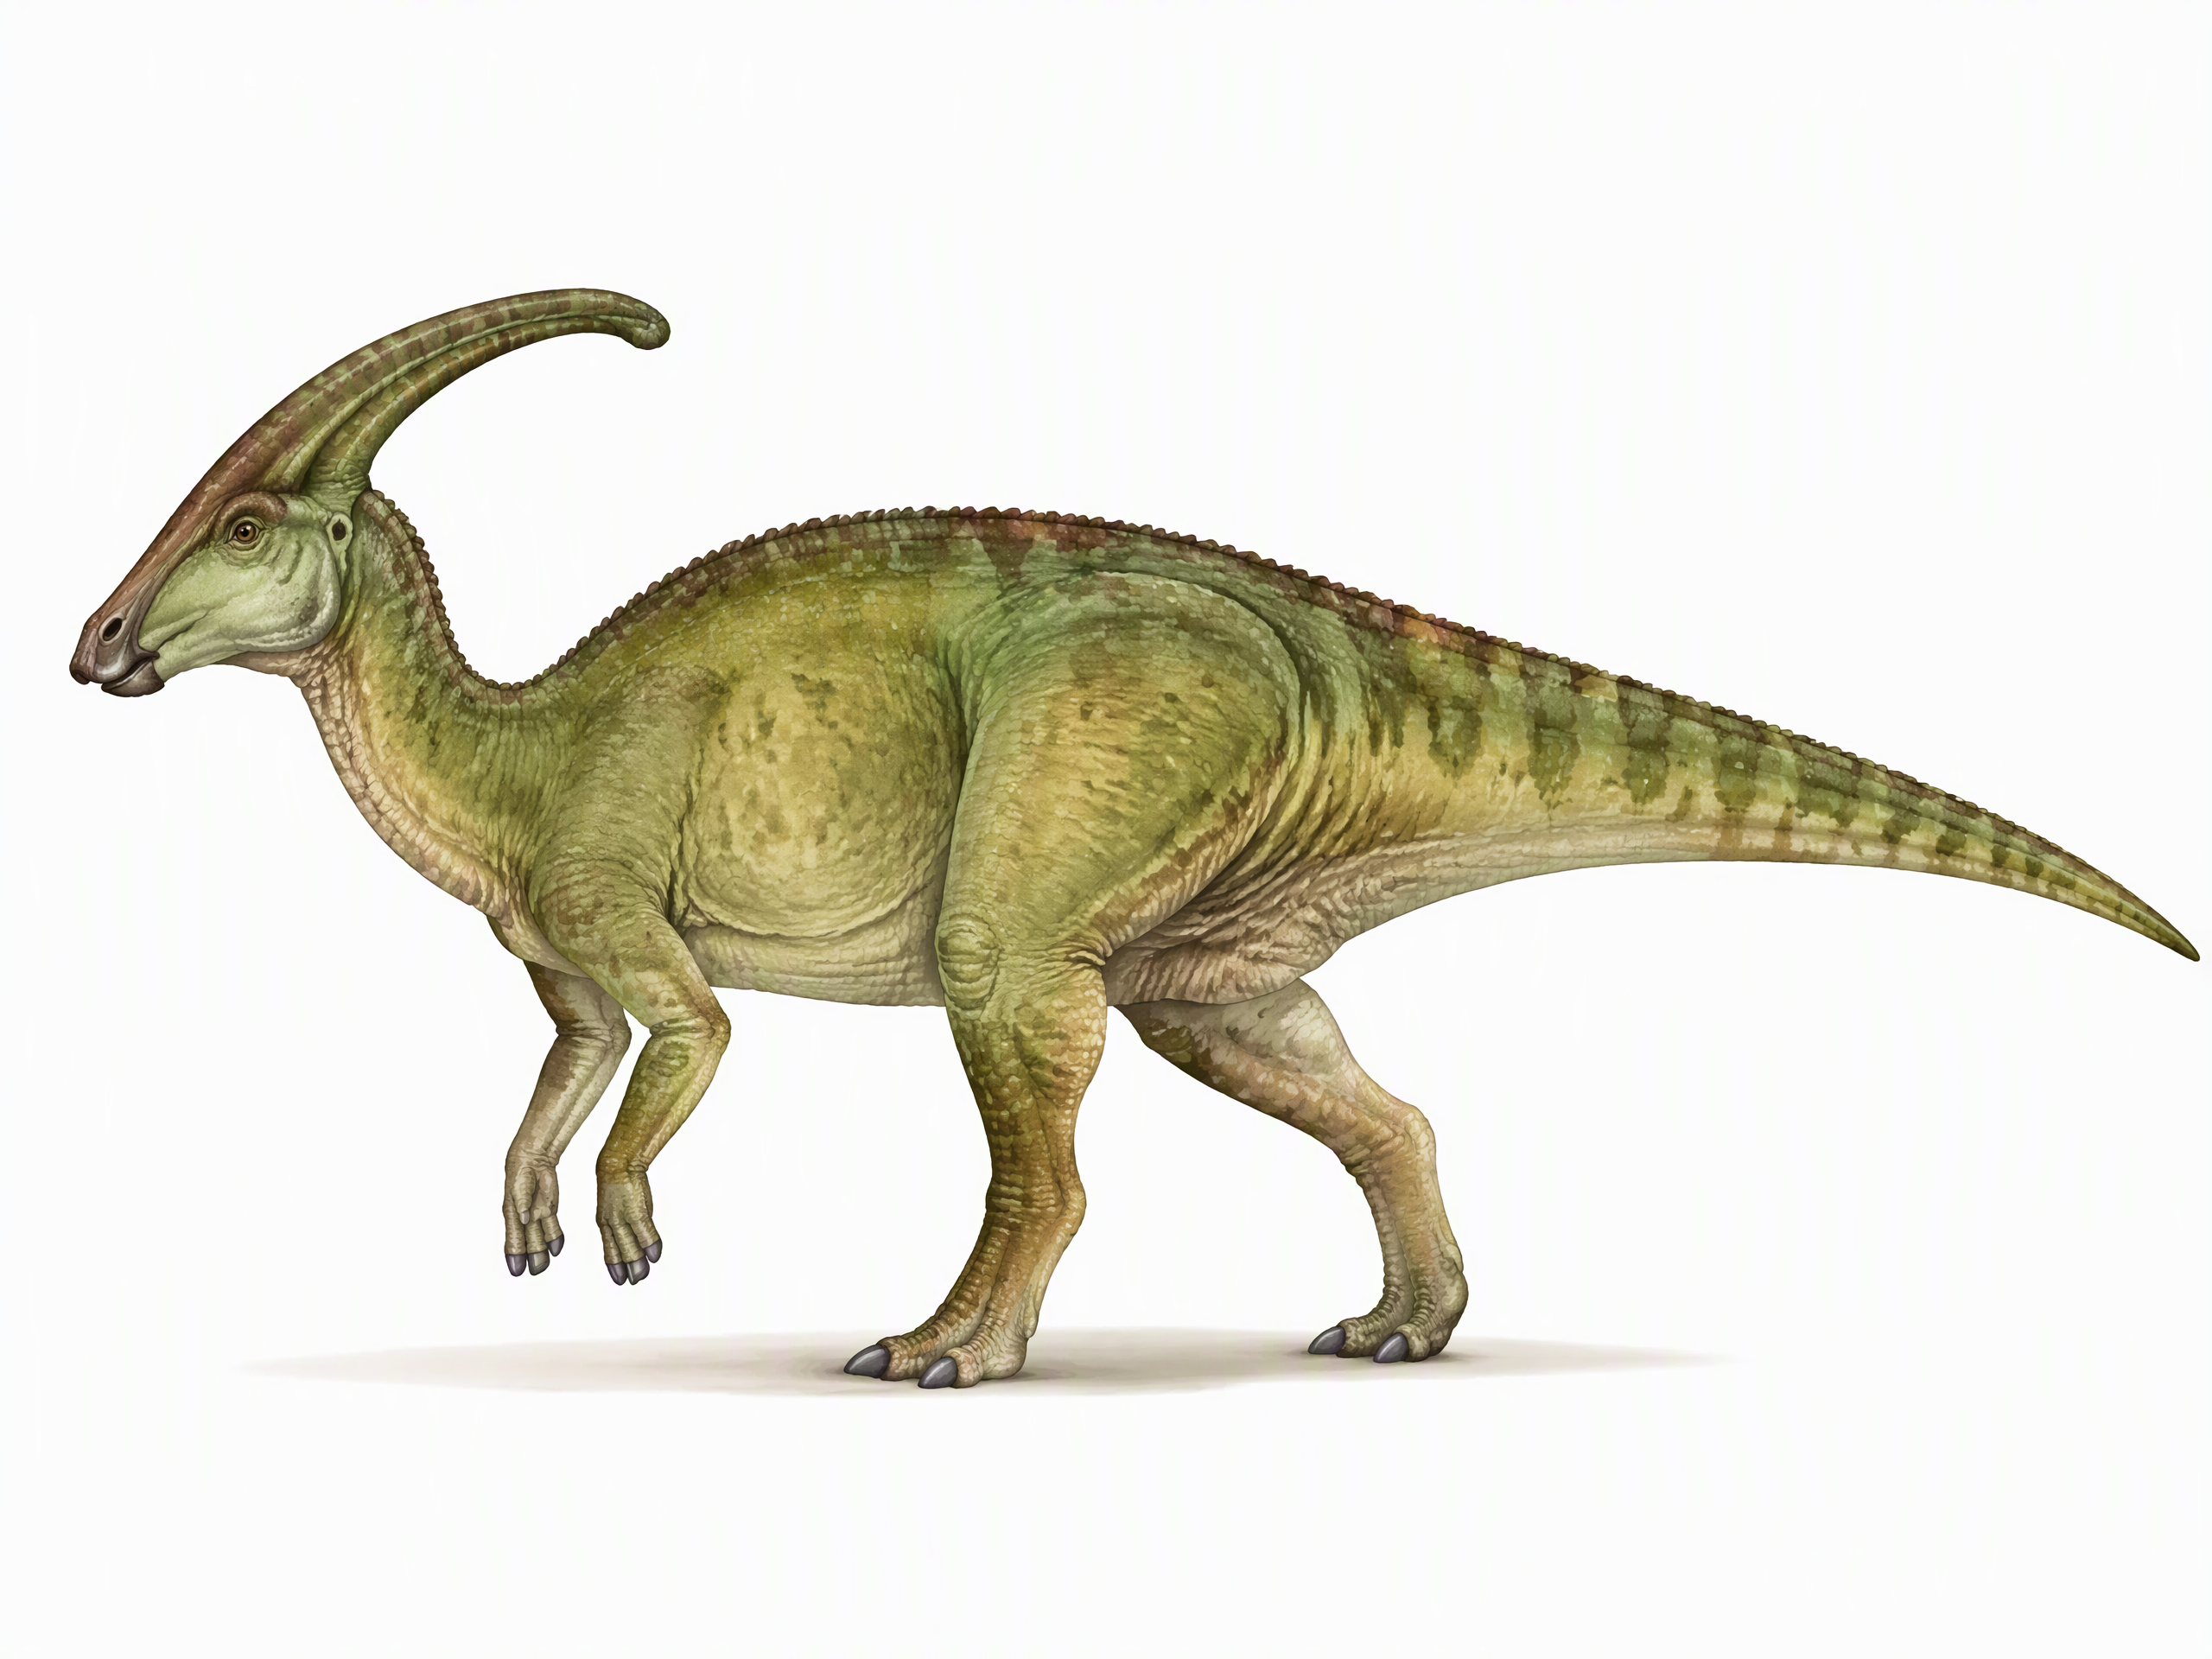
白垩纪末期鸭嘴龙类,以头上长达1.5米的弧形头冠闻名。头冠内部是弯曲的中空管道,连接鼻腔。声学模拟显示,副栉龙可以通过头冠发出低频共鸣声(约30-50赫兹),类似号角——可能是求偶呼唤或群体联络信号。体长约10米,群居。
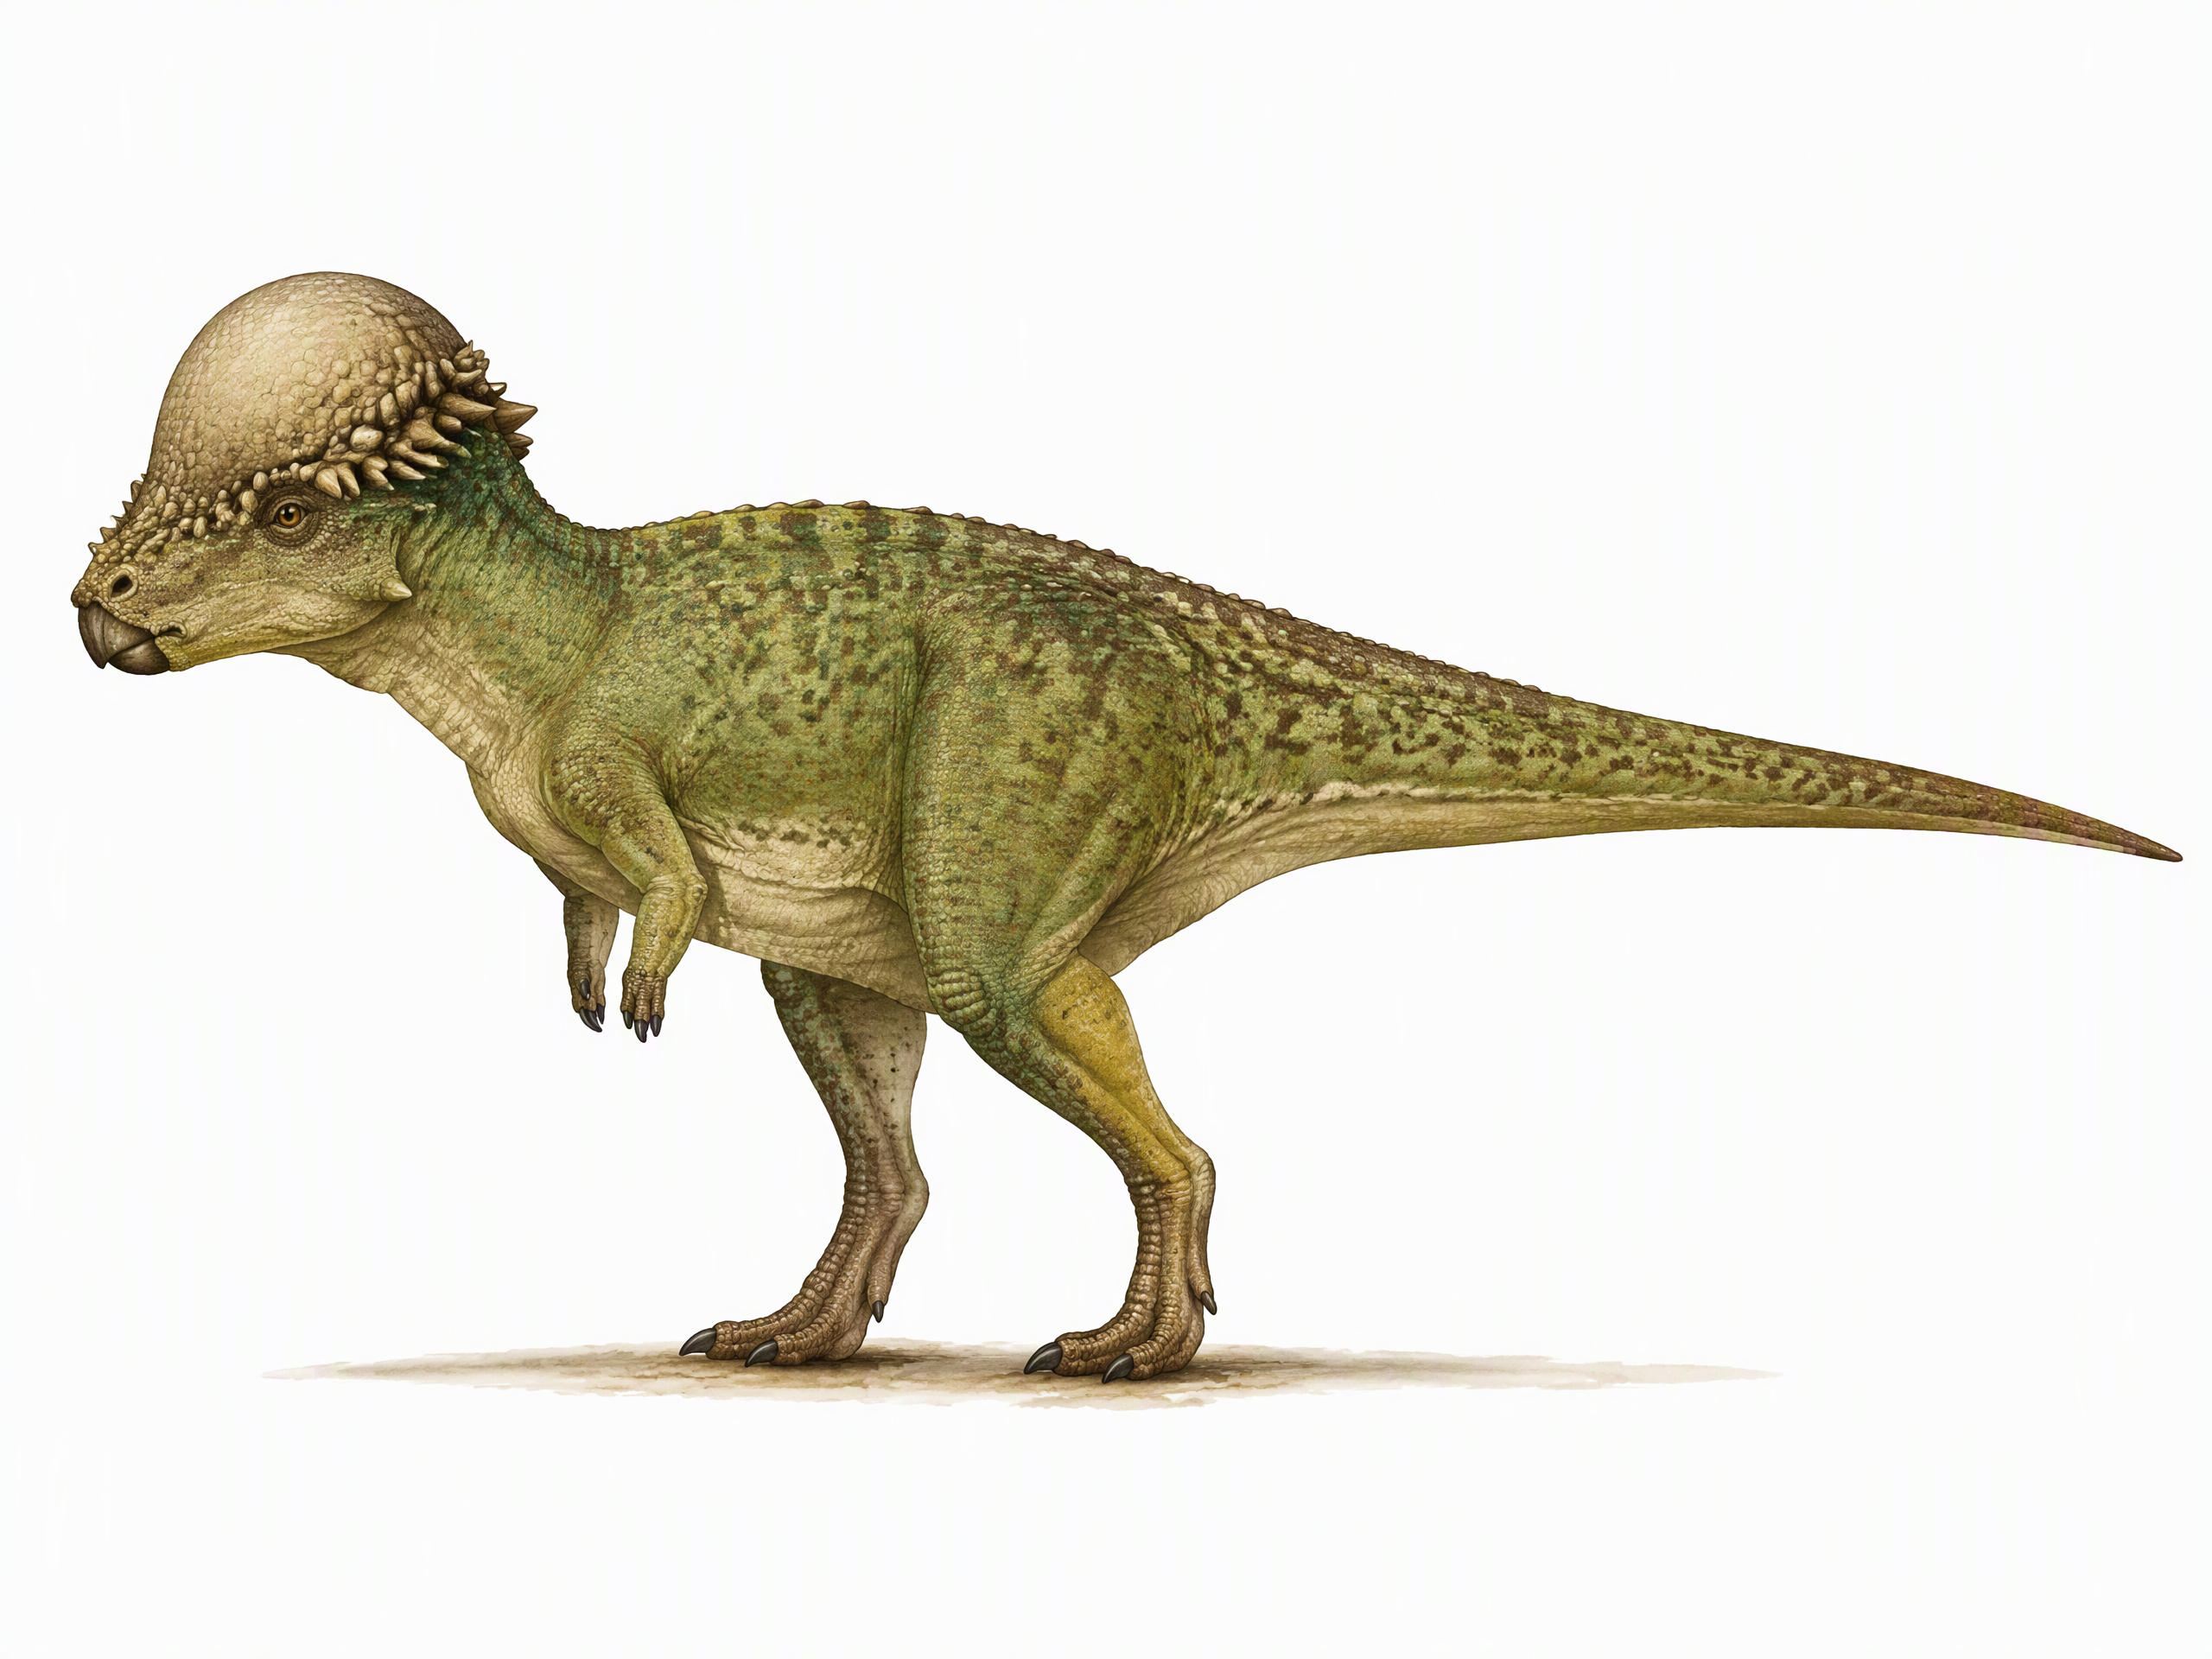
白垩纪末期,以惊人的圆顶头骨闻名。头顶骨厚达25厘米,像戴了头盔。长期以来认为它们像公羊一样头对头撞击,但近年CT扫描显示骨板内部有大量血管,过度撞击会导致脑震荡,所以更可能是侧面顶撞或展示。体长约4.5米,双足行走。
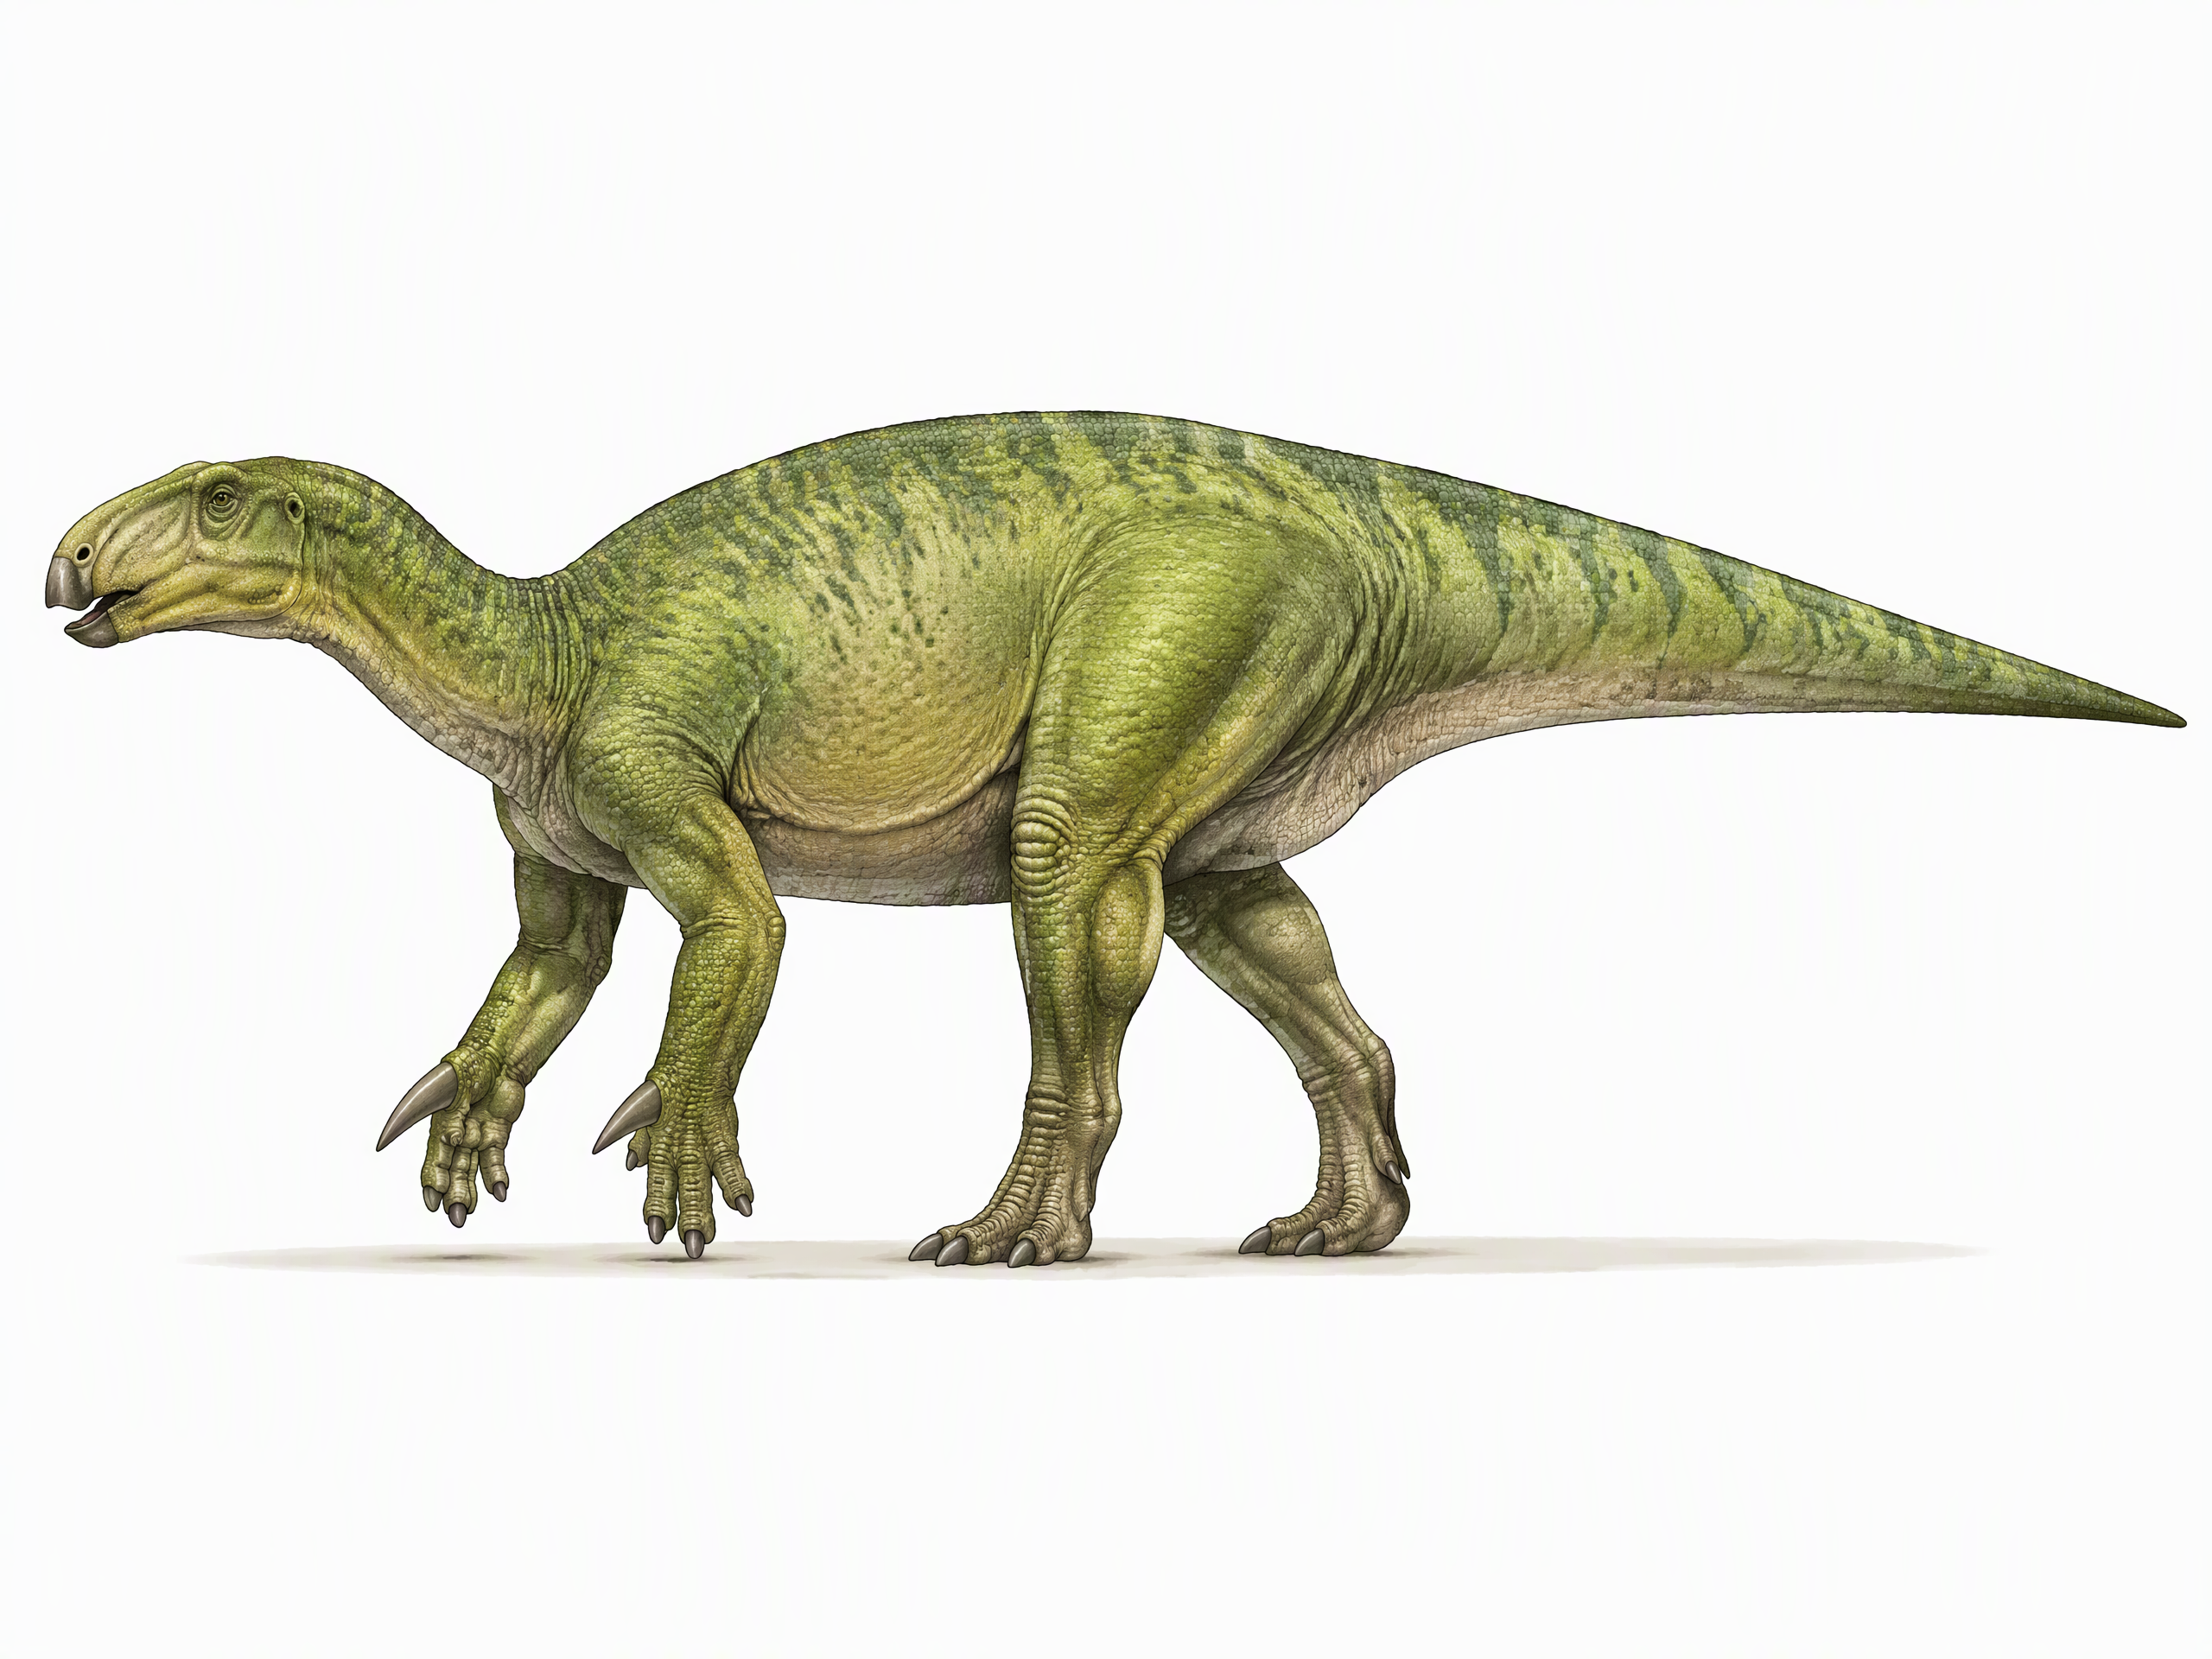
1825年由曼特尔描述,是史上第二种被命名的恐龙(斑龙是第一种)。体长约10米,重约3-4吨。拇指特化成尖锐的锥状"刺指",可能用于防御或觅食。早期复原把刺指误放在鼻子上当角——这是古生物史上著名的错误。禽龙是第一种被复原为直立姿态而非蜥蜴趴姿的恐龙。
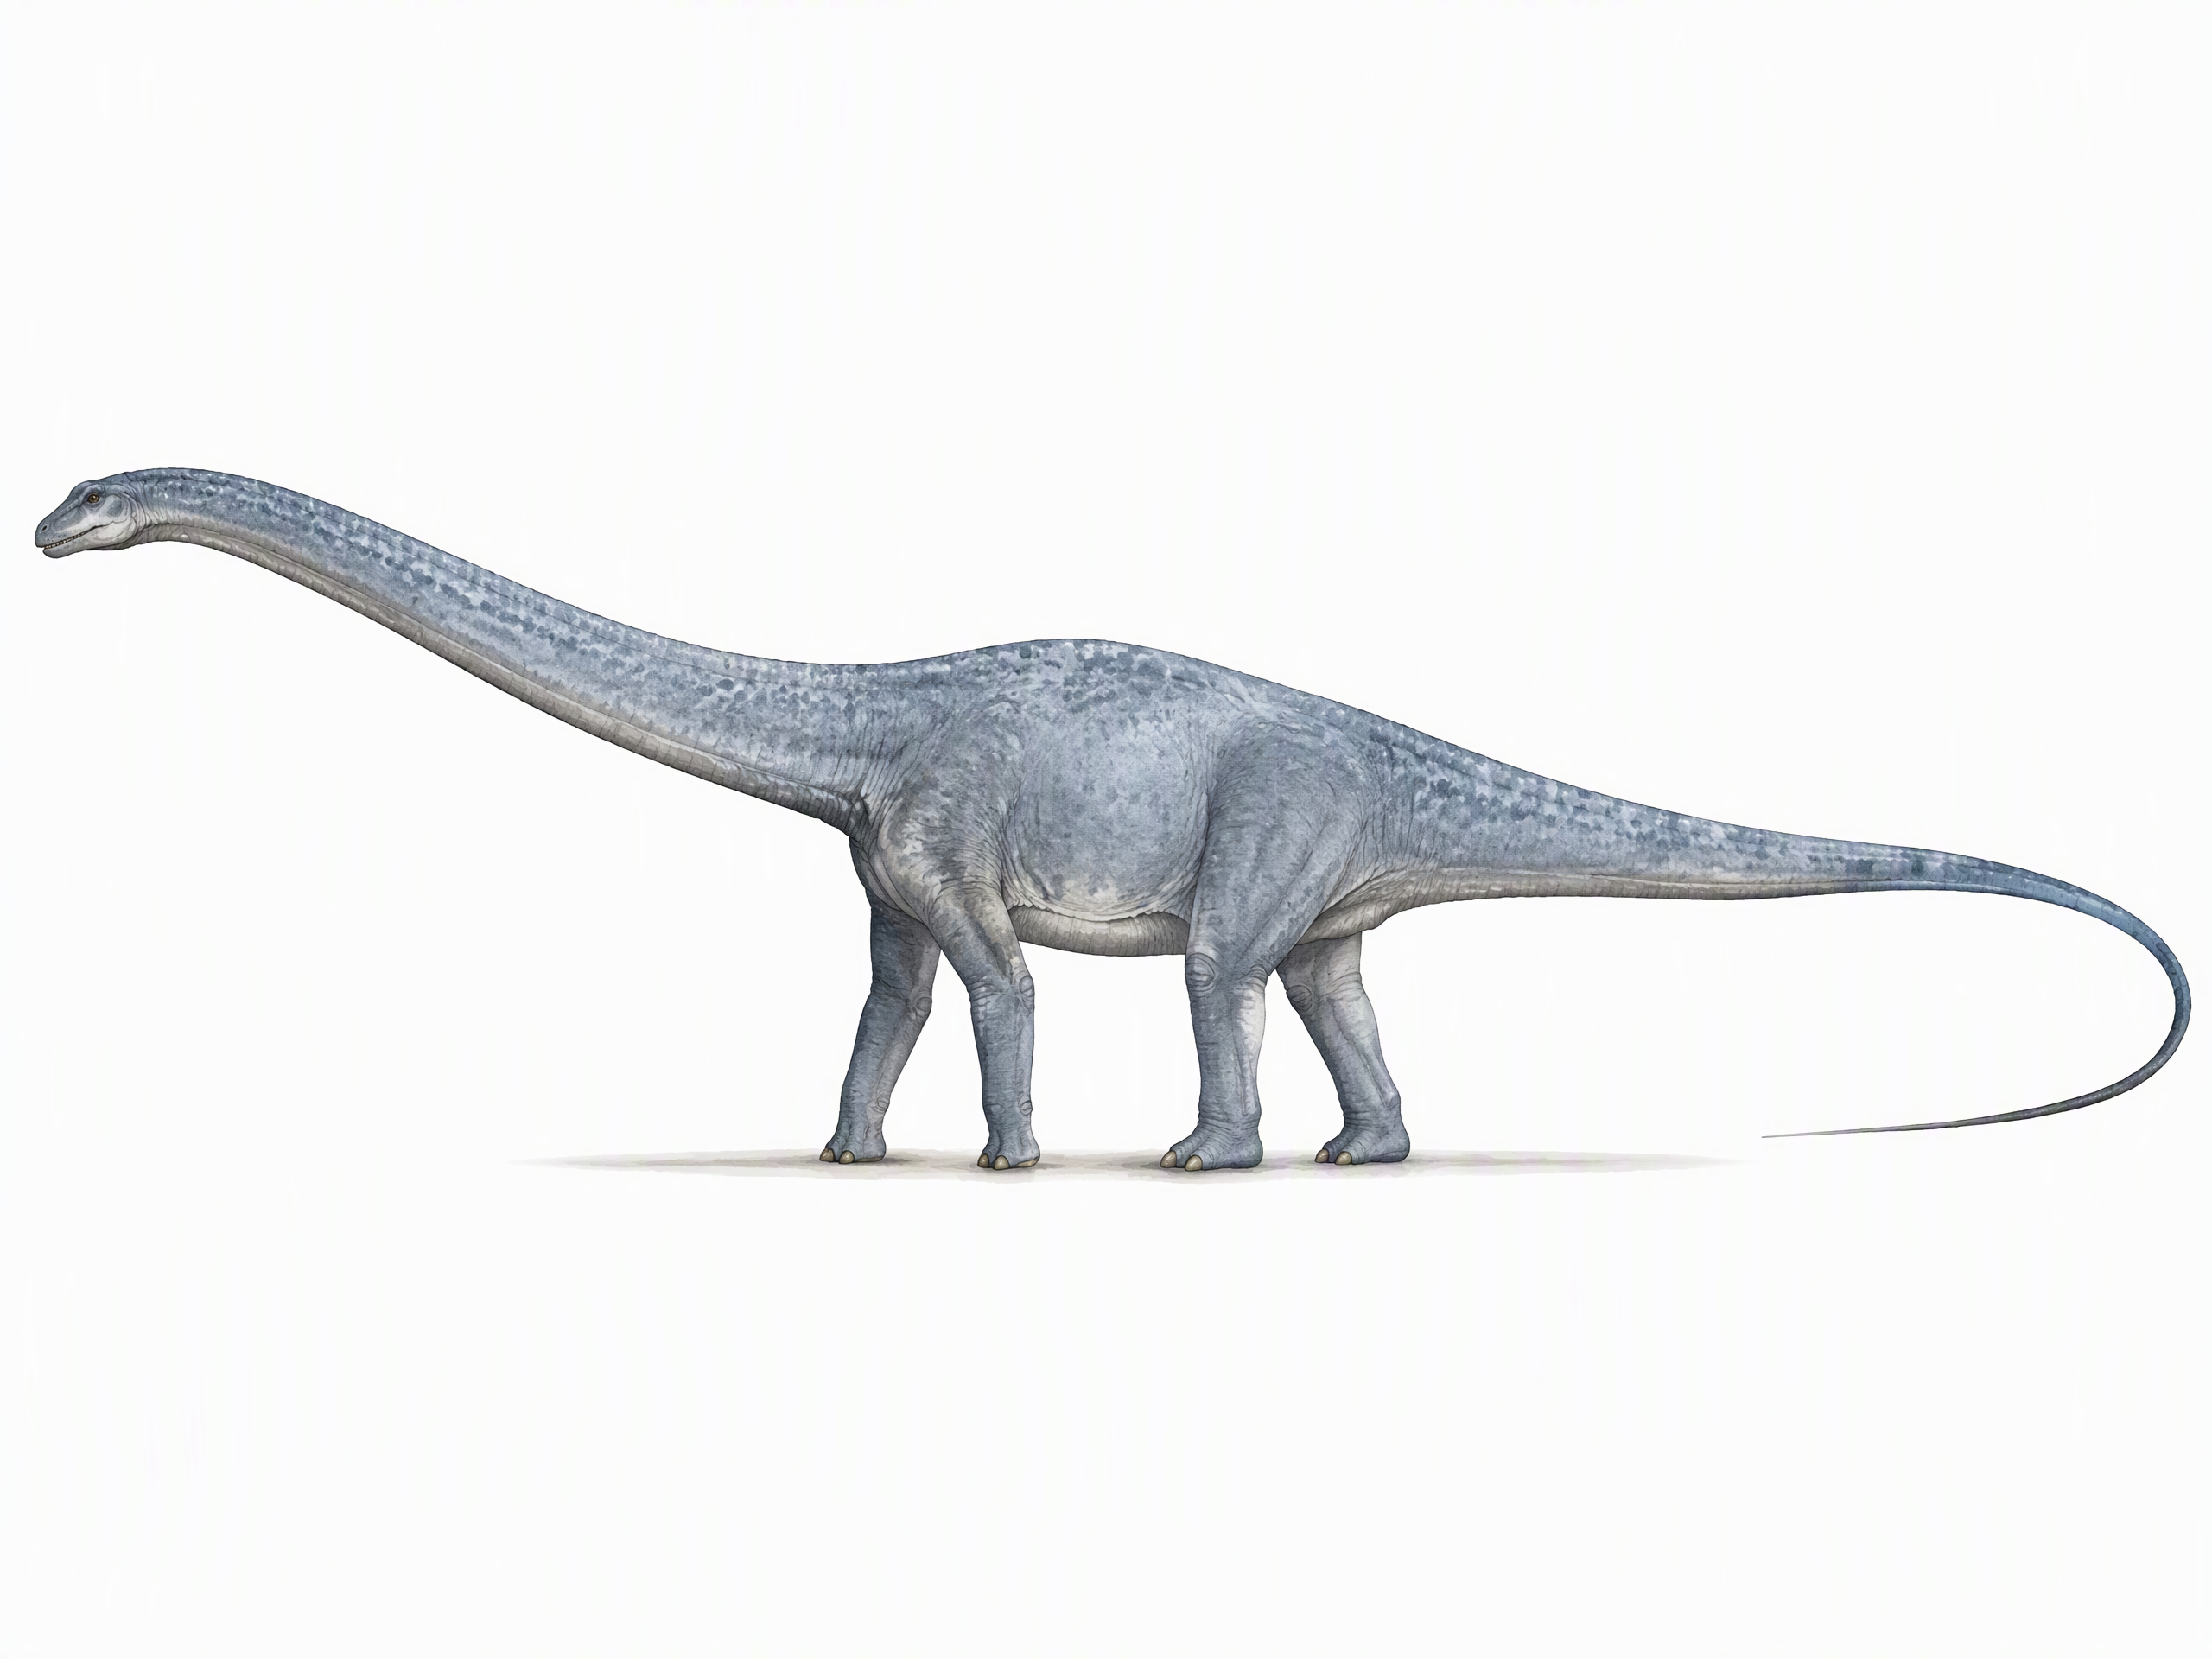
侏罗纪晚期北美标志性长恐龙。体长约25-33米,但因骨骼极细长中空,体重仅约10-16吨——比腕龙轻很多。尾巴极长(超过80节尾椎),像鞭子。牙齿呈铅笔状,可能"剥离"式采食,不做精细咀嚼。骨骼化石中有大量侧凹,是气囊系统延伸进脊柱的证据。
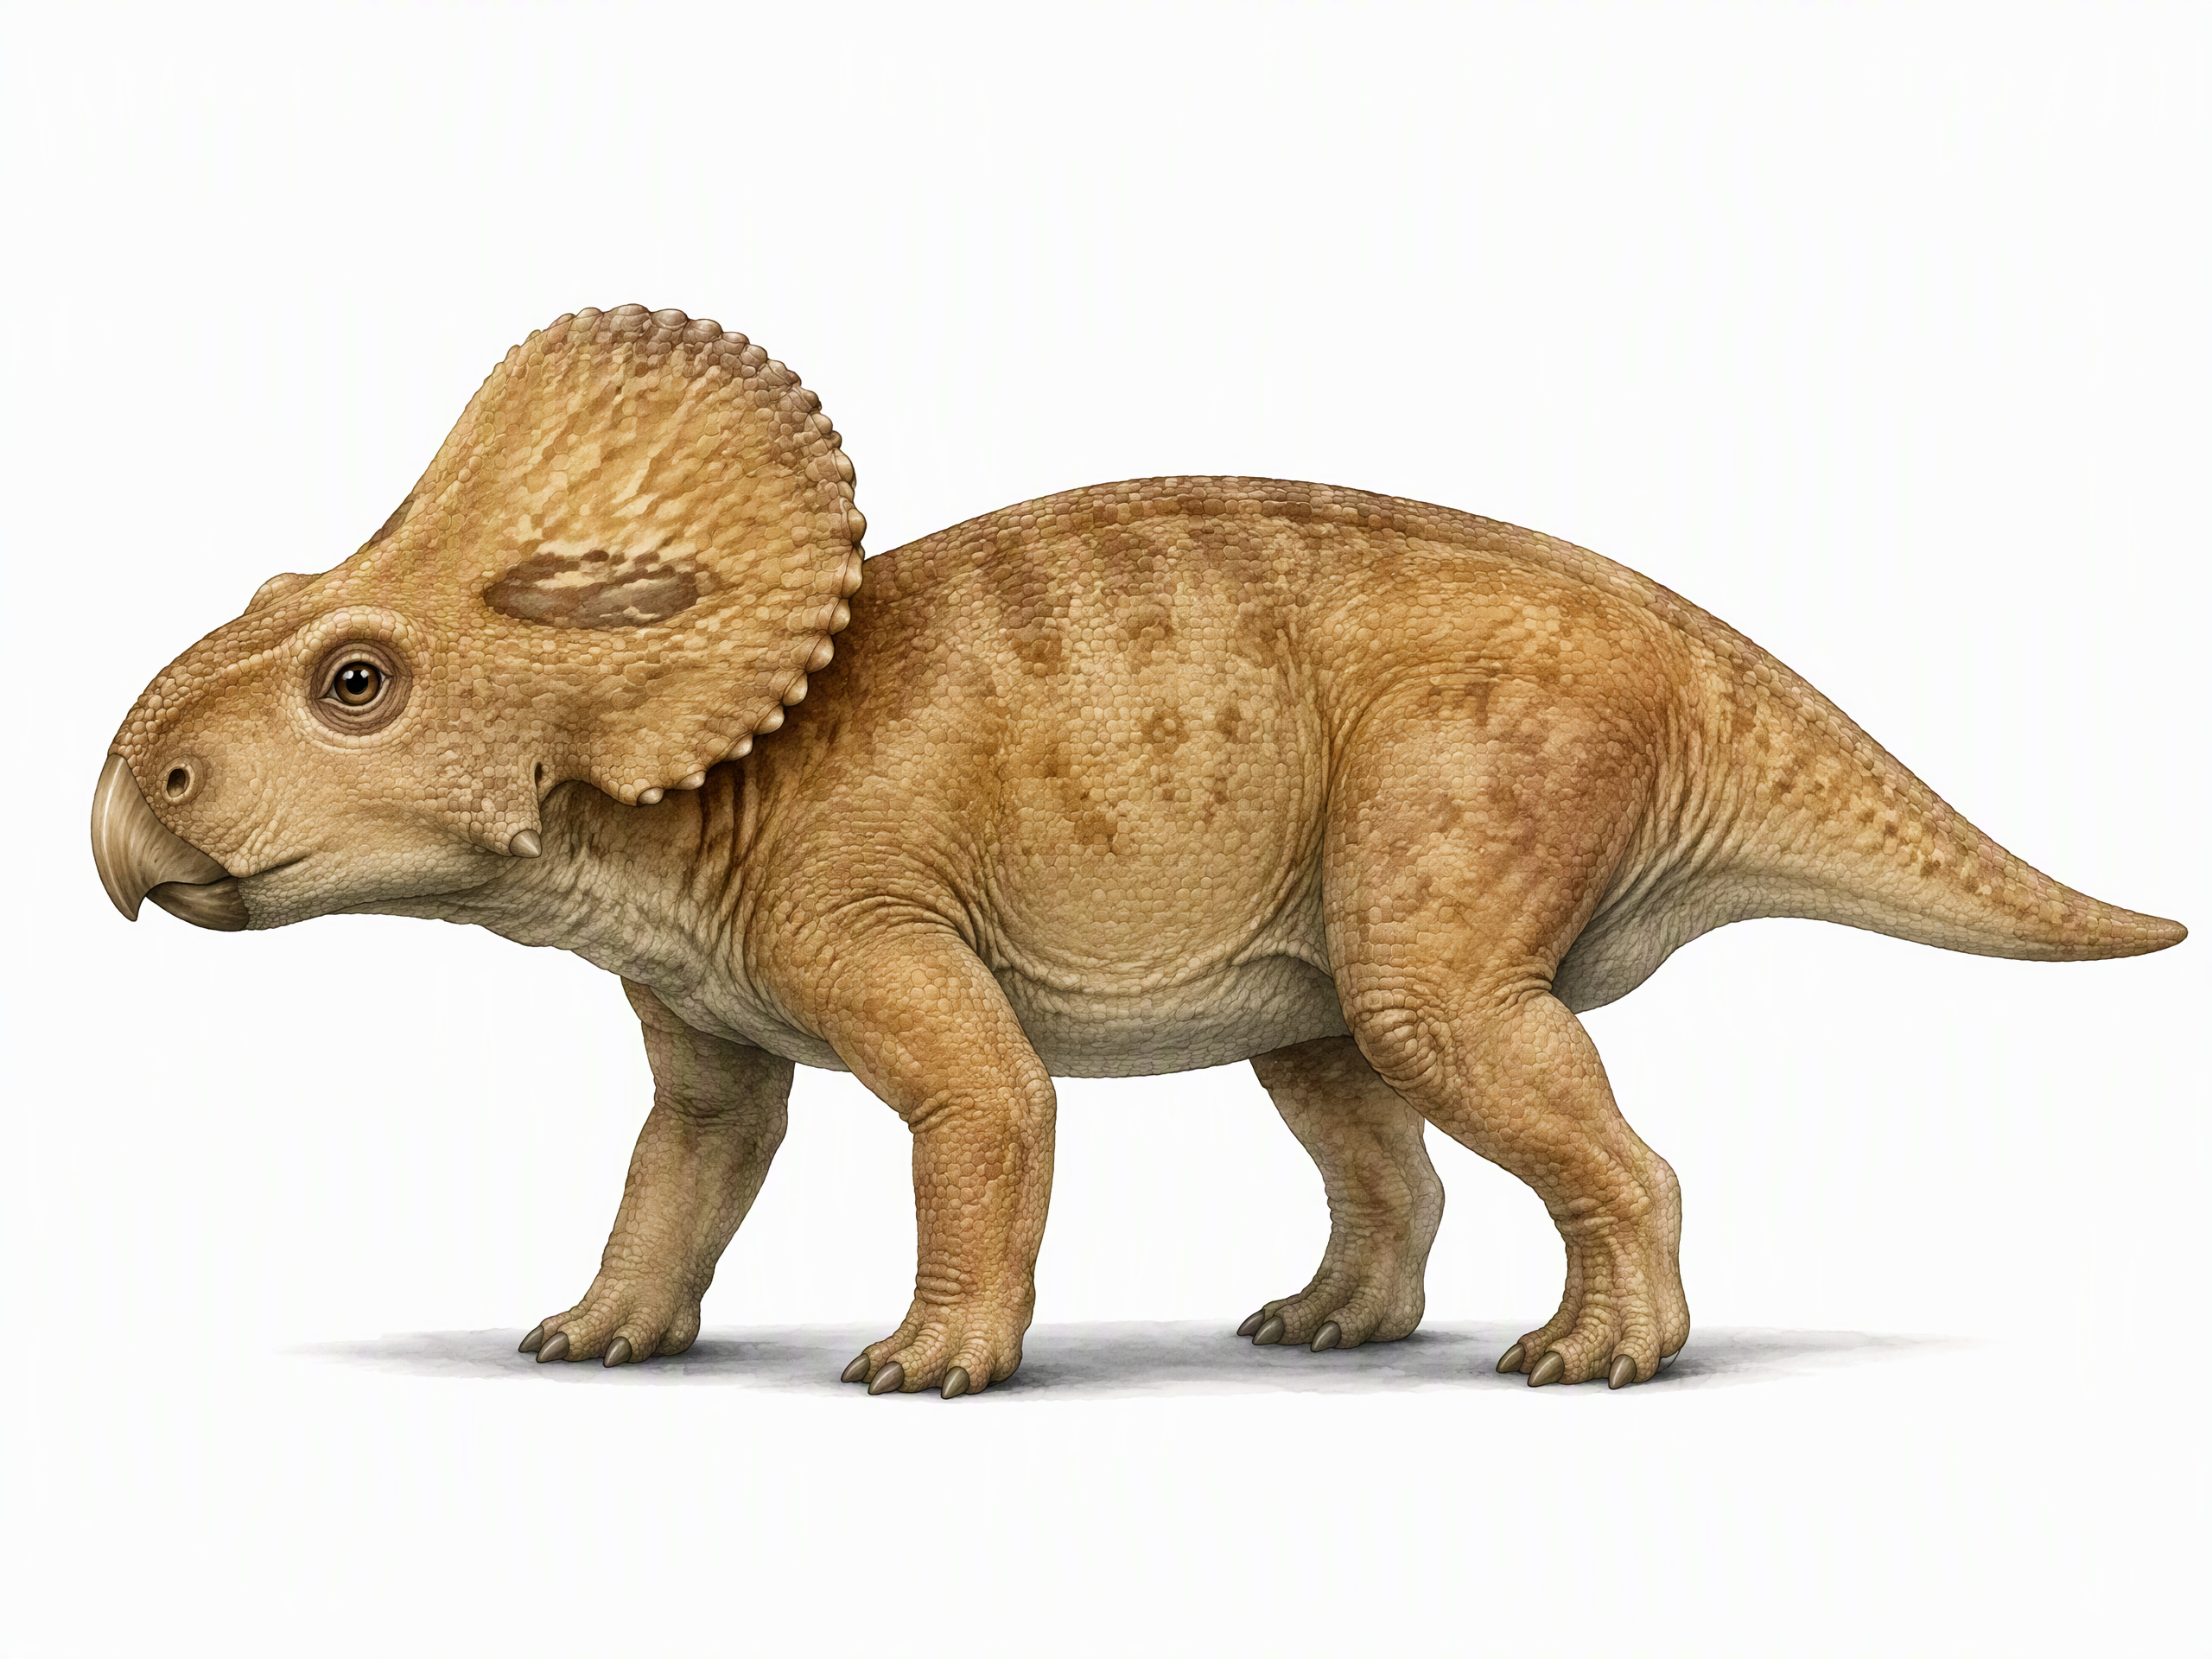
白垩纪亚洲小型角龙类,体长约2米。没有真正的角,但头盾已成型,是三角龙的"祖先形态"。蒙古戈壁沙漠发现了大量原角龙化石,包括整窝恐龙蛋和从蛋中孵化的幼体——这是最早确认恐龙蛋属于哪种恐龙的关键证据。著名的"搏斗化石"就是原角龙与迅猛龙互相死死抓咬的瞬间。
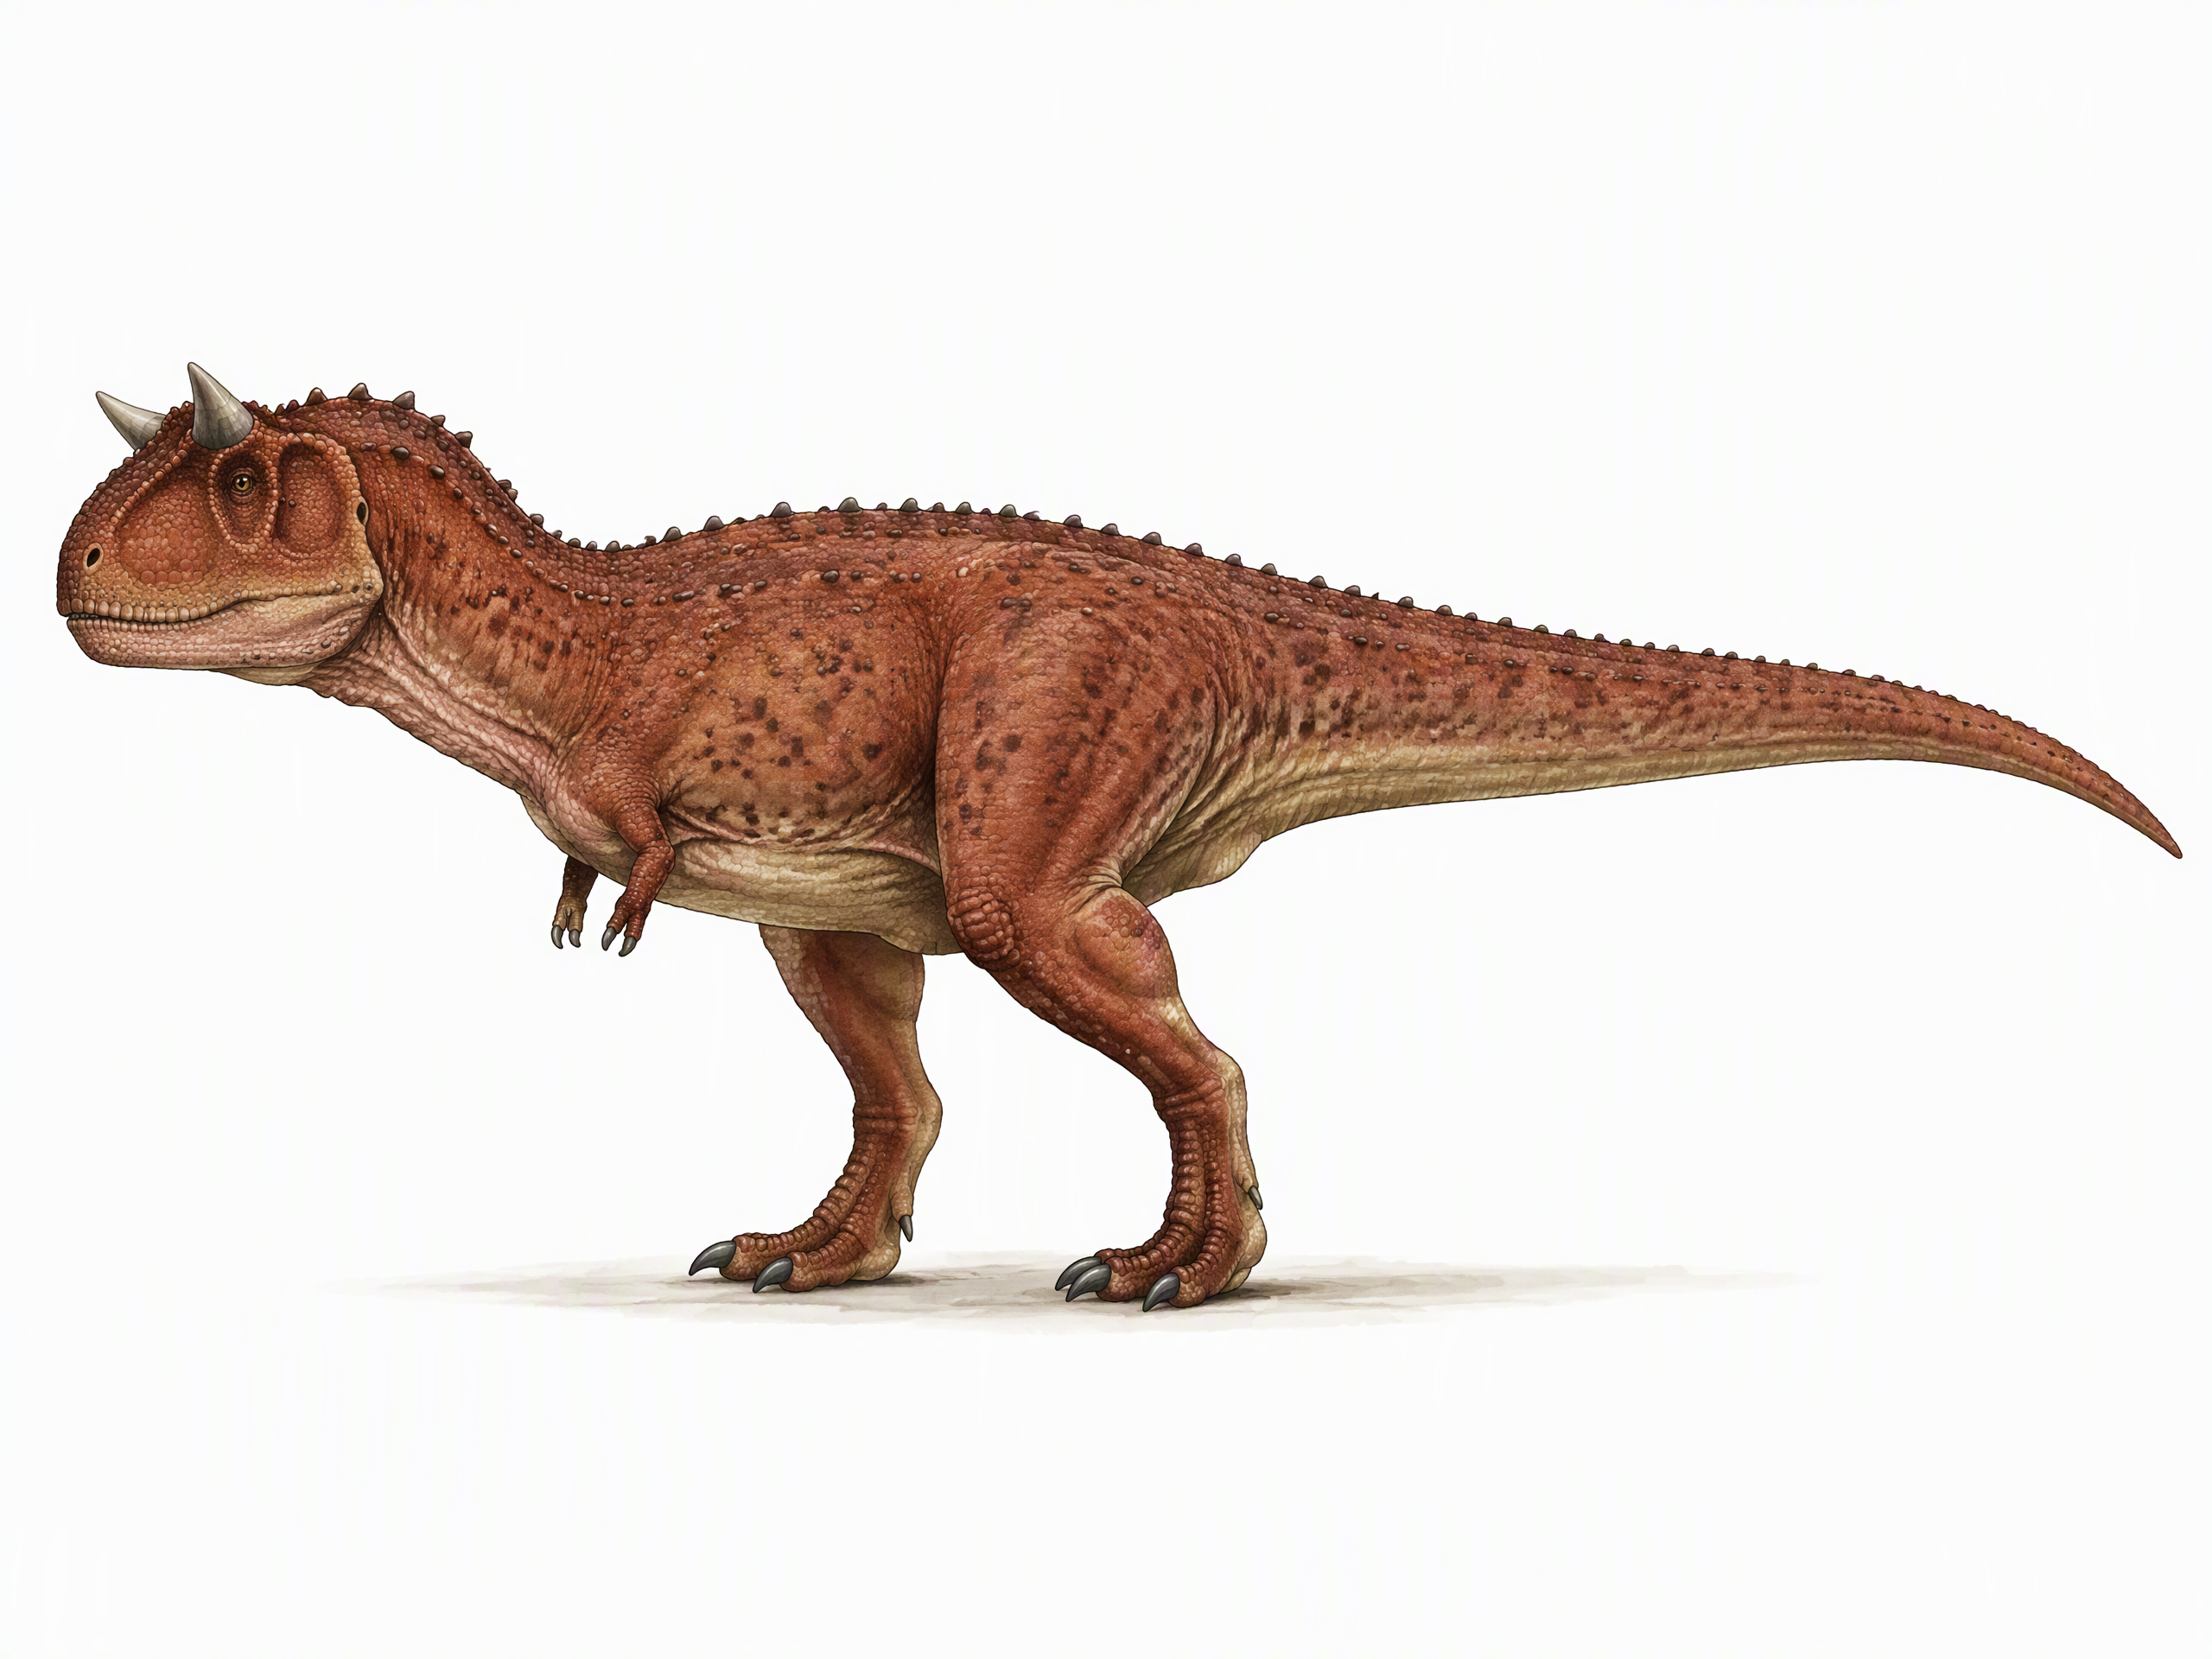
白垩纪晚期南美洲奇特的肉食龙,头顶有两根短而粗的角(像牛角),因此得名。体长约8米,头骨极短而深。前肢比霸王龙还退化——几乎看不见。但身体极为灵活,腿部修长,推测是高速追逐型猎手,速度可能达50-60km/h。皮肤化石显示全身覆盖突起的鳞甲。
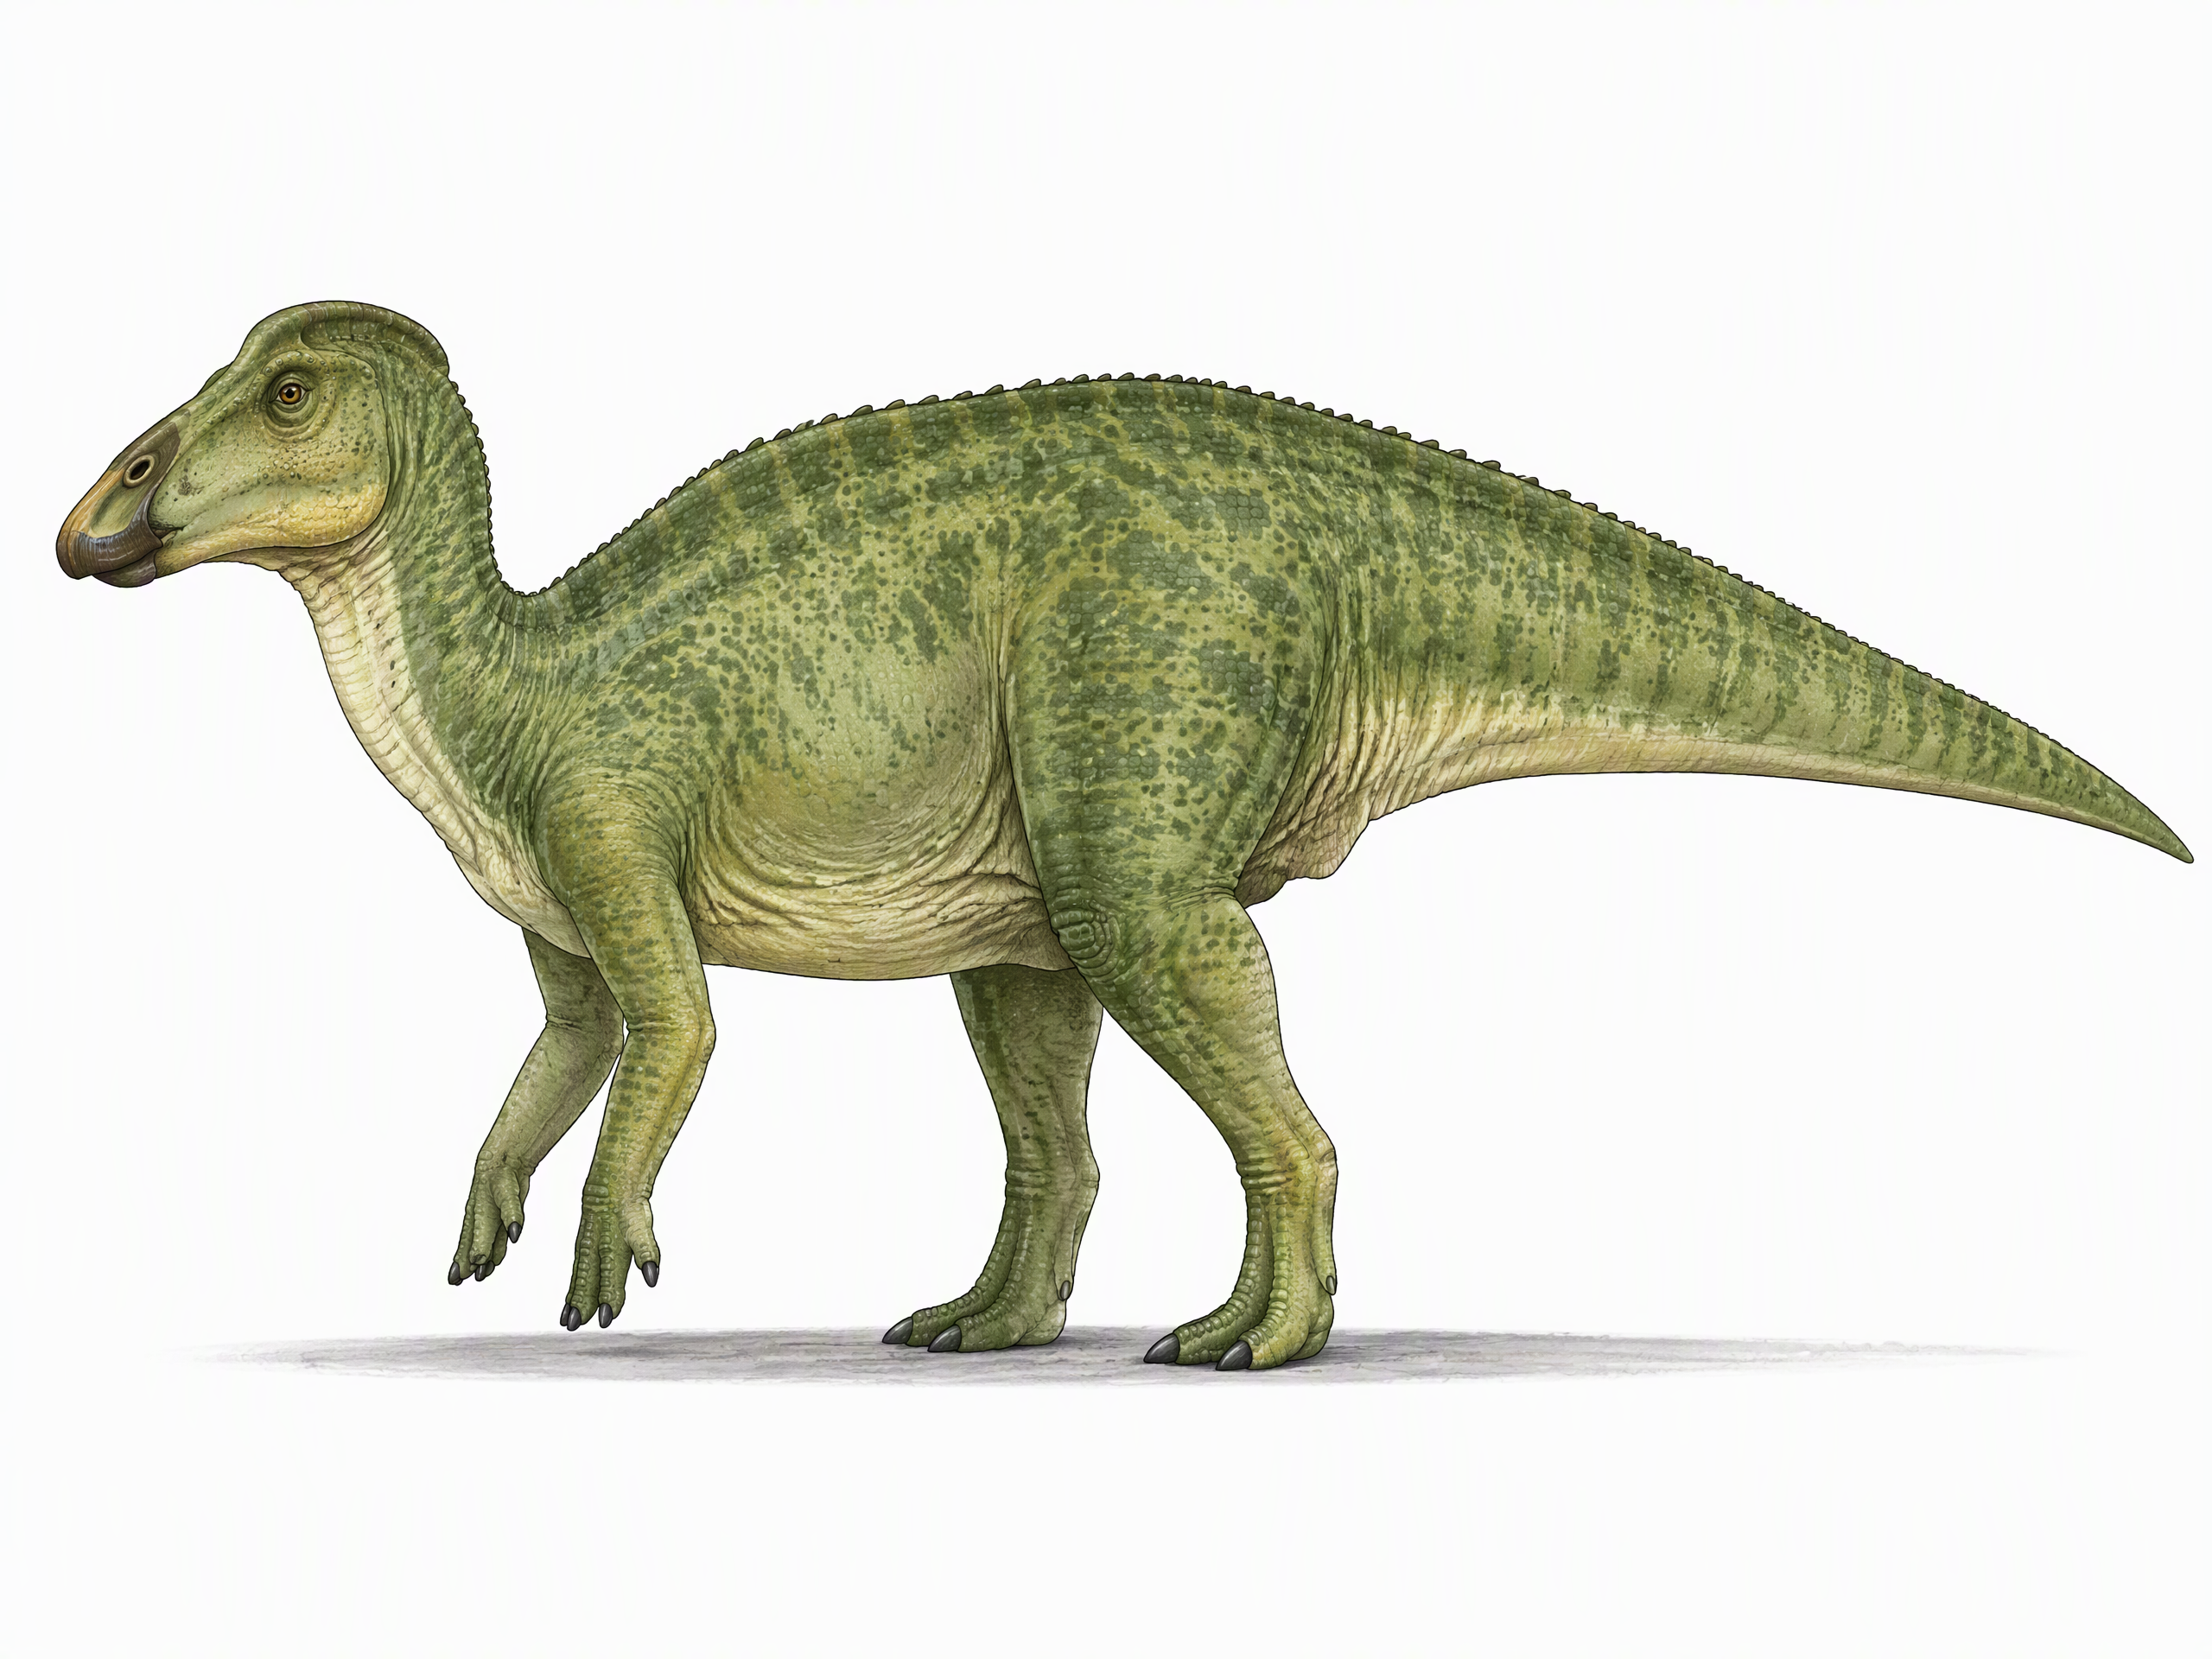
白垩纪晚期鸭嘴龙类,名字意为"好母亲蜥蜴"。1978年在蒙大拿发现了慈母龙巢群——成年个体守护在一窝幼龙旁边,幼龙牙齿已磨耗但关节未愈合,说明幼龙孵化后仍留在巢中,由父母喂食照顾。这是恐龙有育幼行为的最早证据,改变了"恐龙只管生不管养"的旧观念。
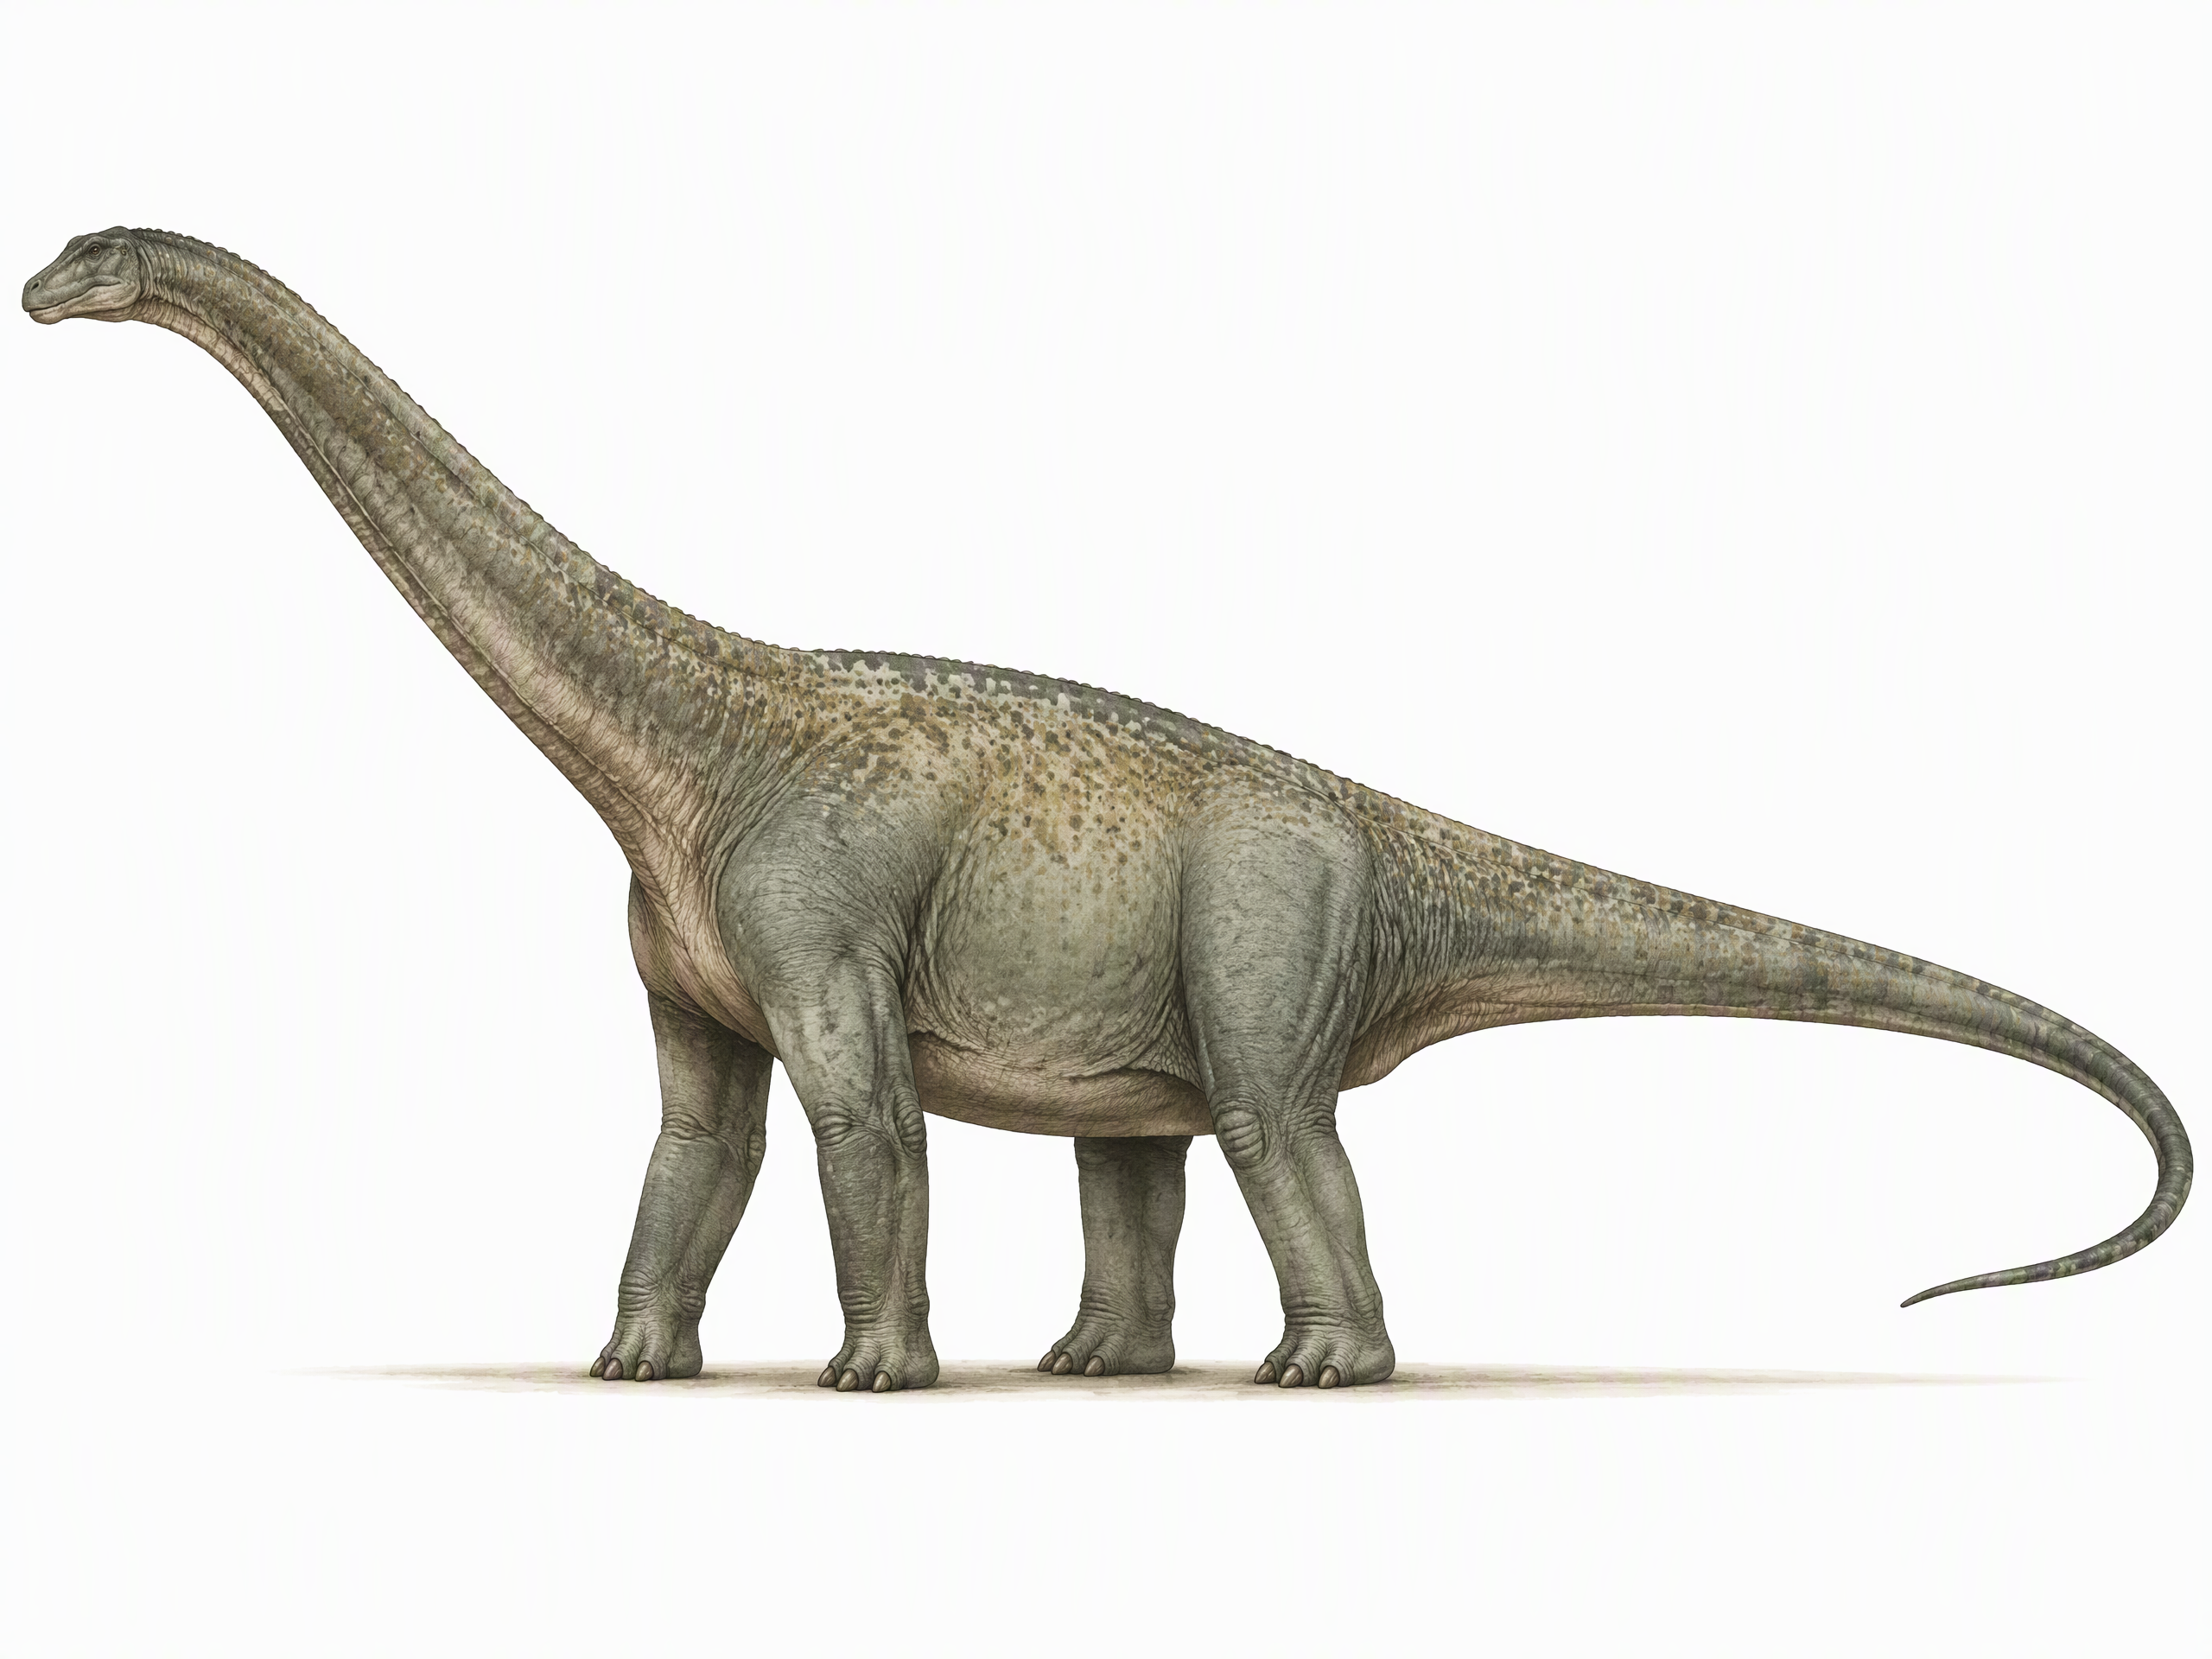
已知最重的陆地动物,体长约30-35米,体重约60-90吨。仅从少量骨骼推断,但已经足够令人震撼。白垩纪中期生活在南美阿根廷。它的天敌是同样巨大的南方巨兽龙——"最大植食者 vs 最大肉食者"的对决是地球史上最壮观的单挑。每天需要约500公斤植物才能维持。
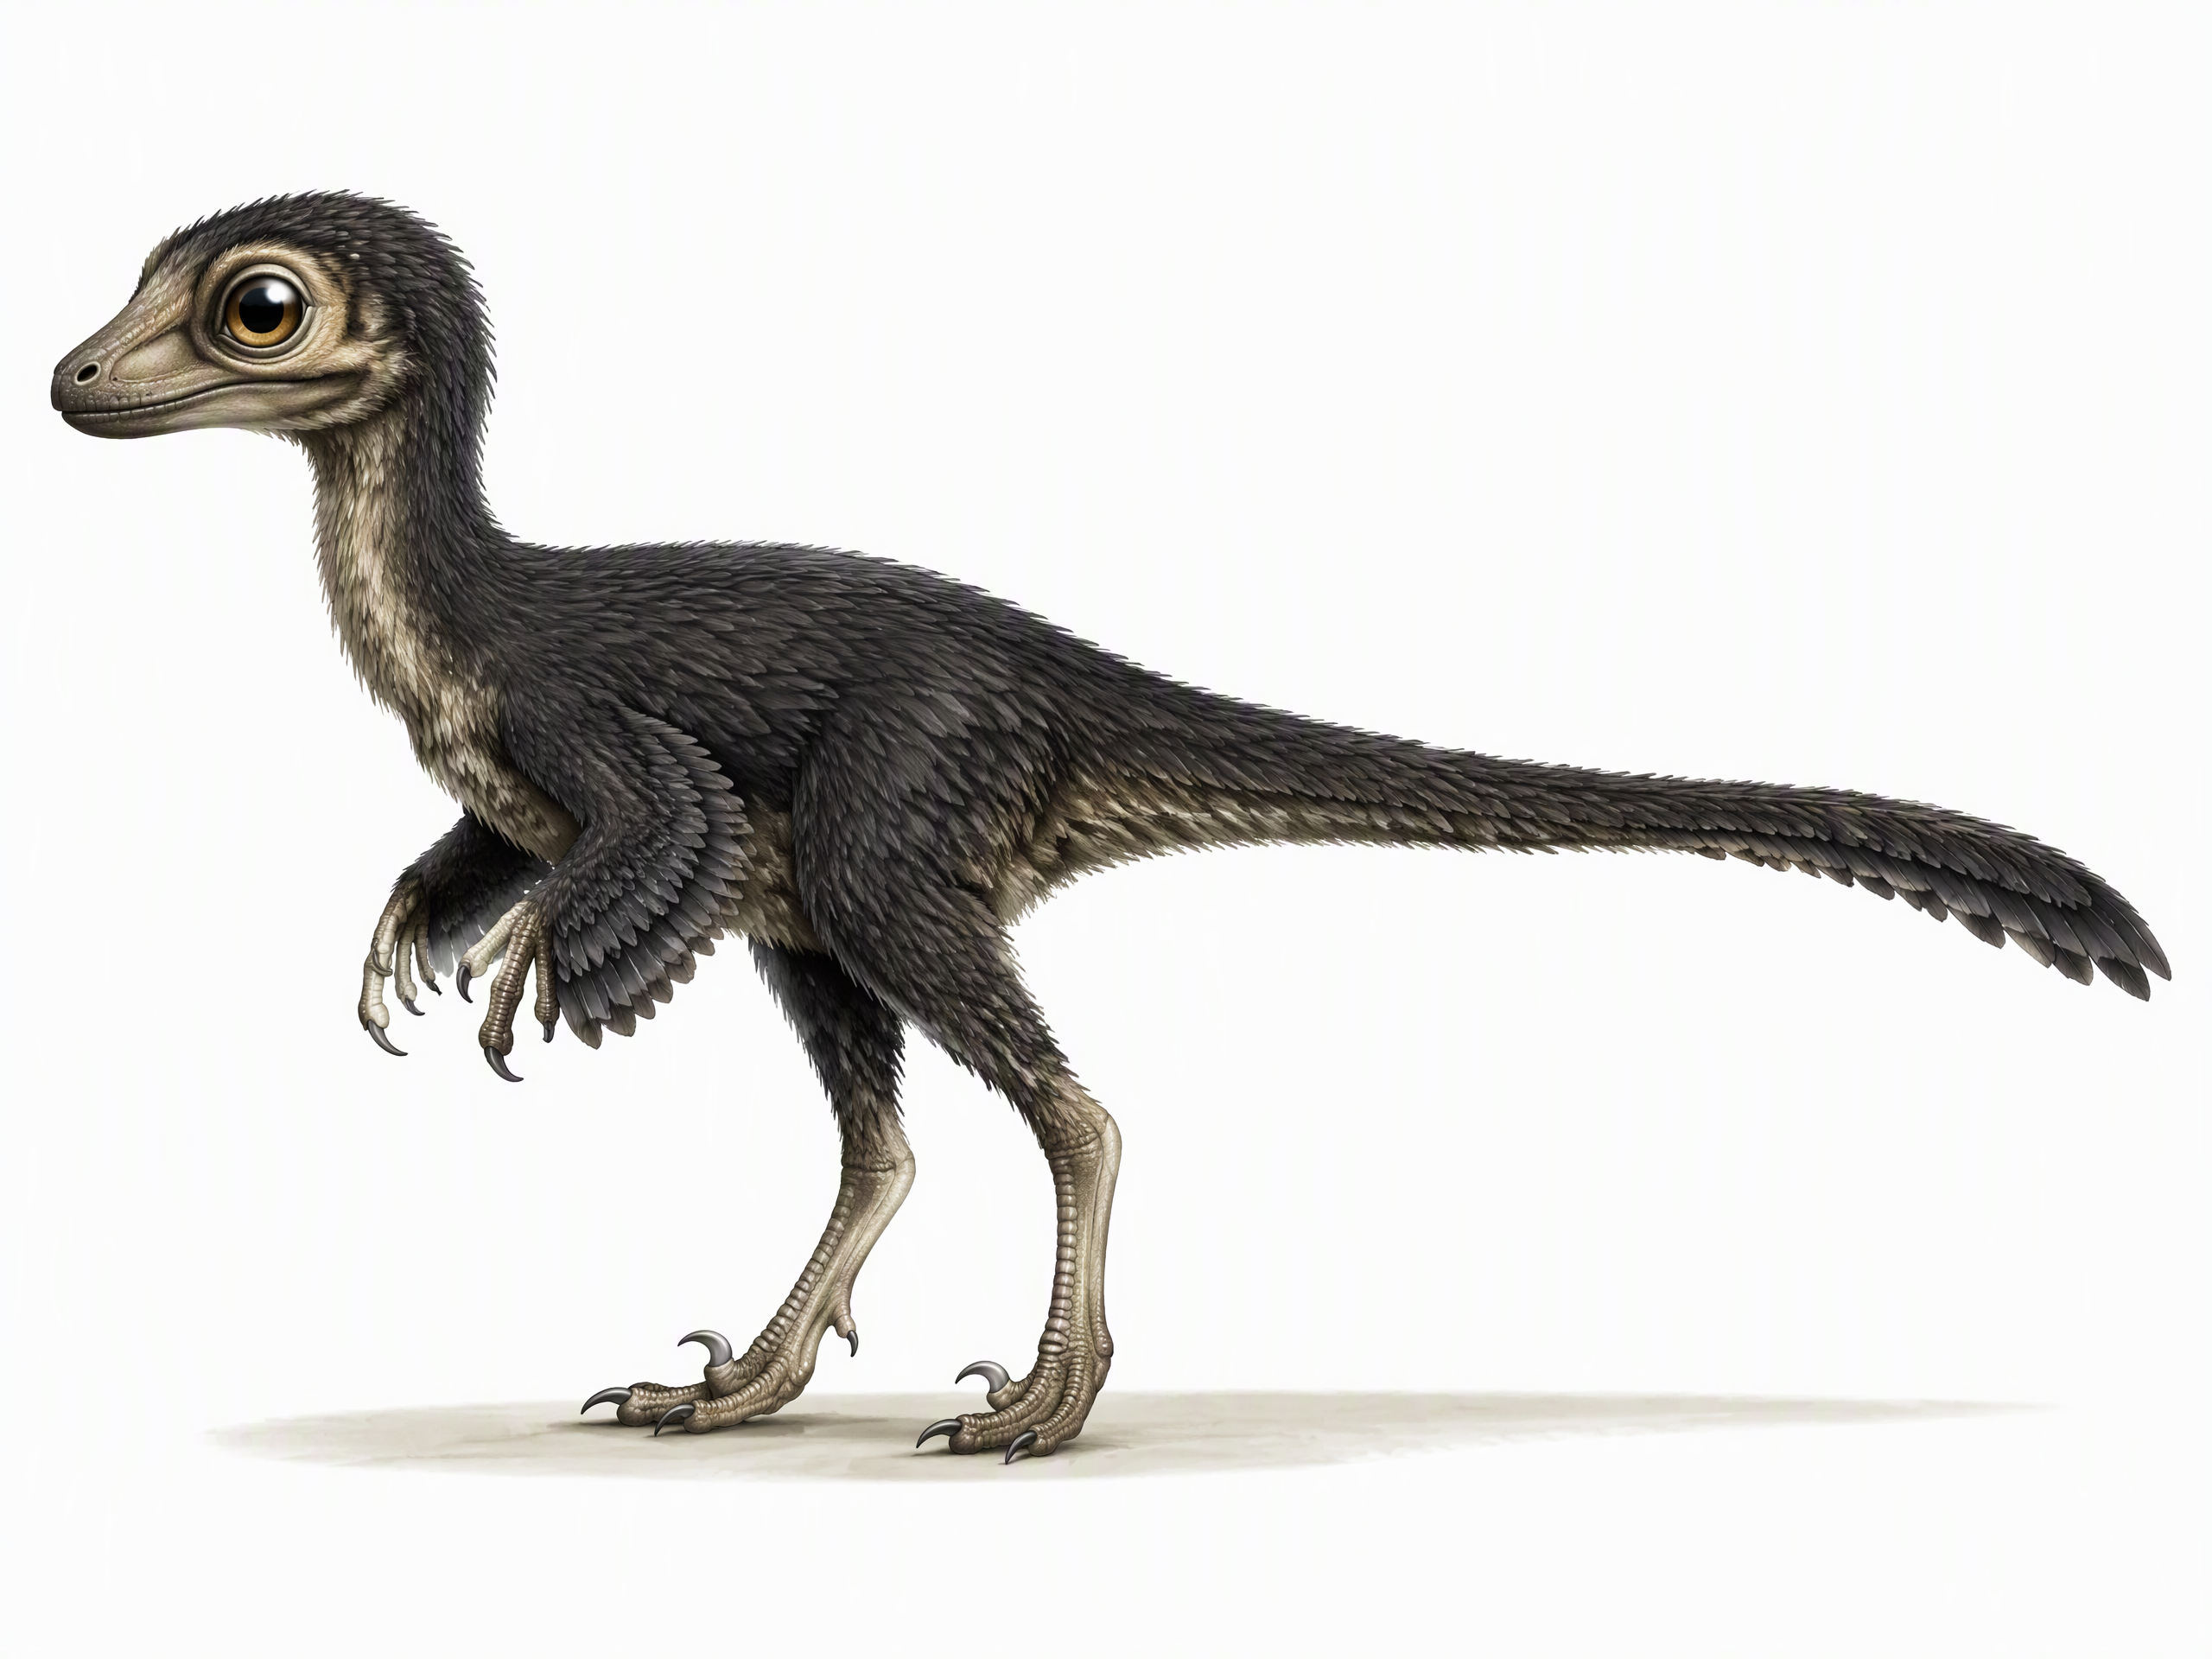
恐龙中脑容量最大的物种(EQ约0.7-1.0),被称为"最聪明的恐龙"。体长约2-2.5米,眼睛巨大(夜视能力?),牙齿尖锐带锯齿。推测可能是夜行性,靠视觉和智力伏击小型猎物。科幻界甚至假想过"恐龙人"——如果灭绝没发生,伤齿龙是否能演化出智慧文明。
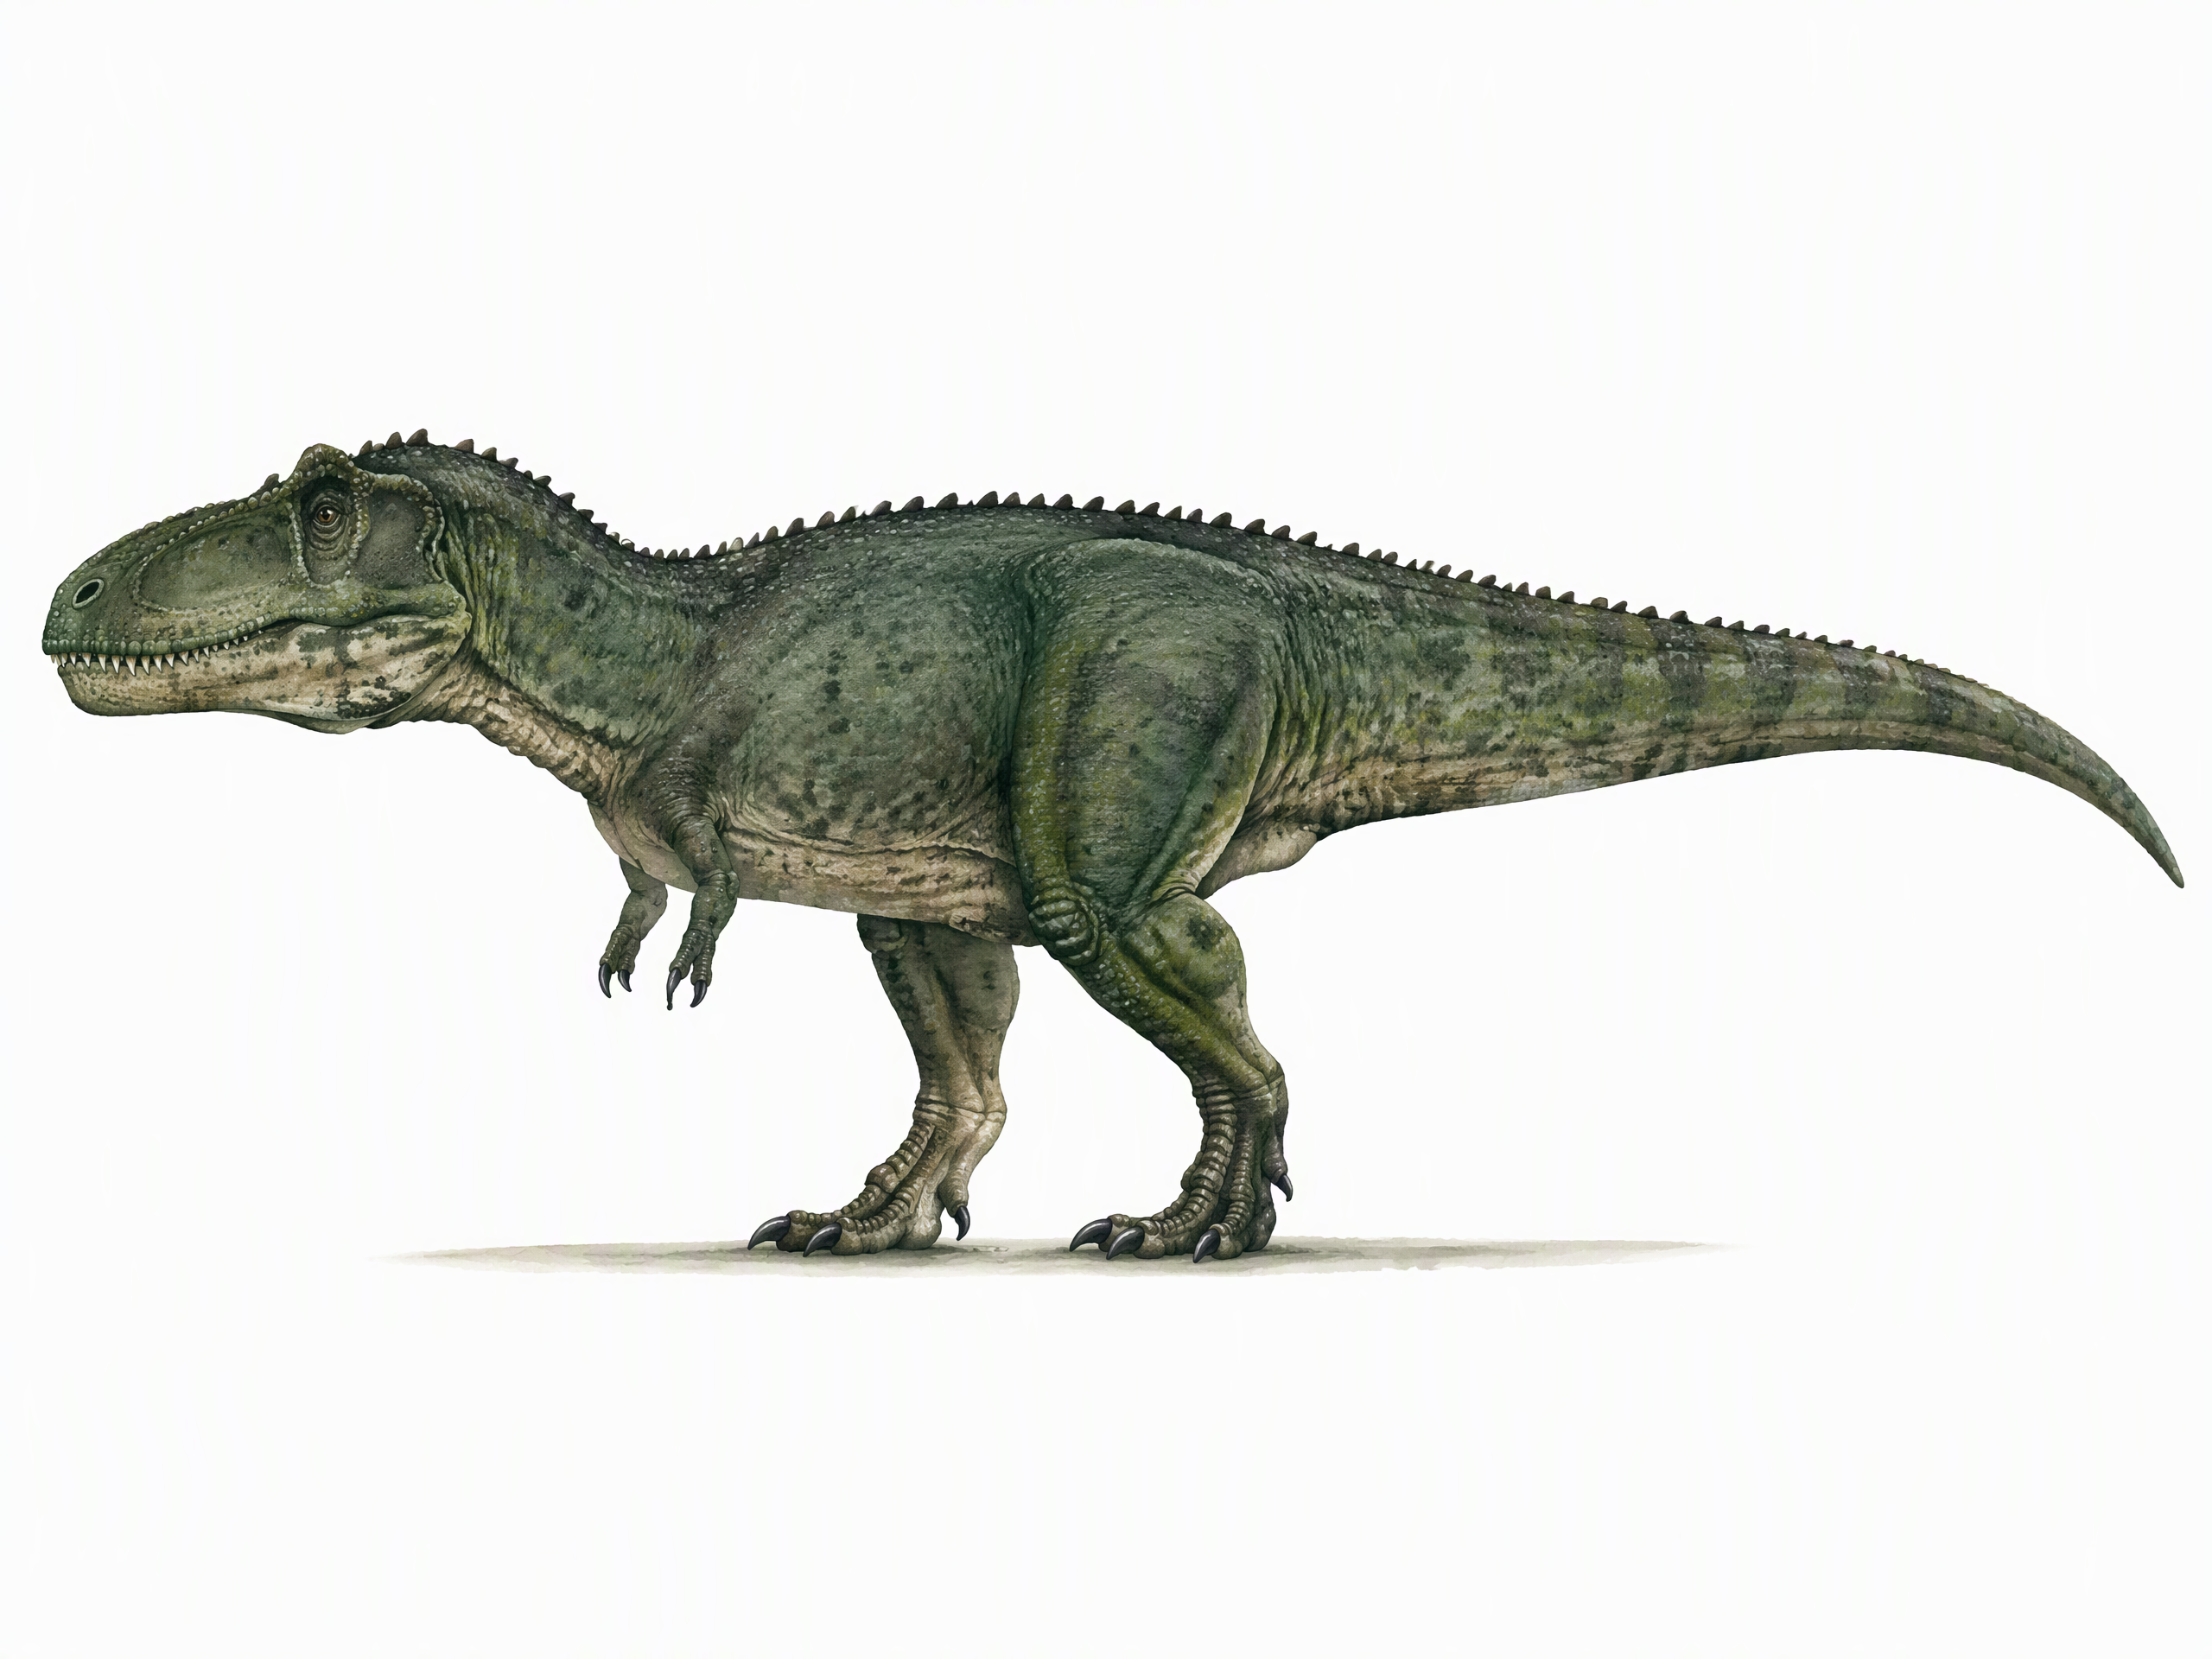
与霸王龙争夺"最大肉食恐龙"称号的南美巨兽。体长约12-13米,体重约6-8吨,可能比霸王龙更长但更轻。与霸王龙几乎不同时代不同大陆,无法真正比较。牙齿为刀刃型,适合切割而非碾压。狩猎对象正是阿根廷龙——它可能以群体协作攻击巨型蜥脚类。
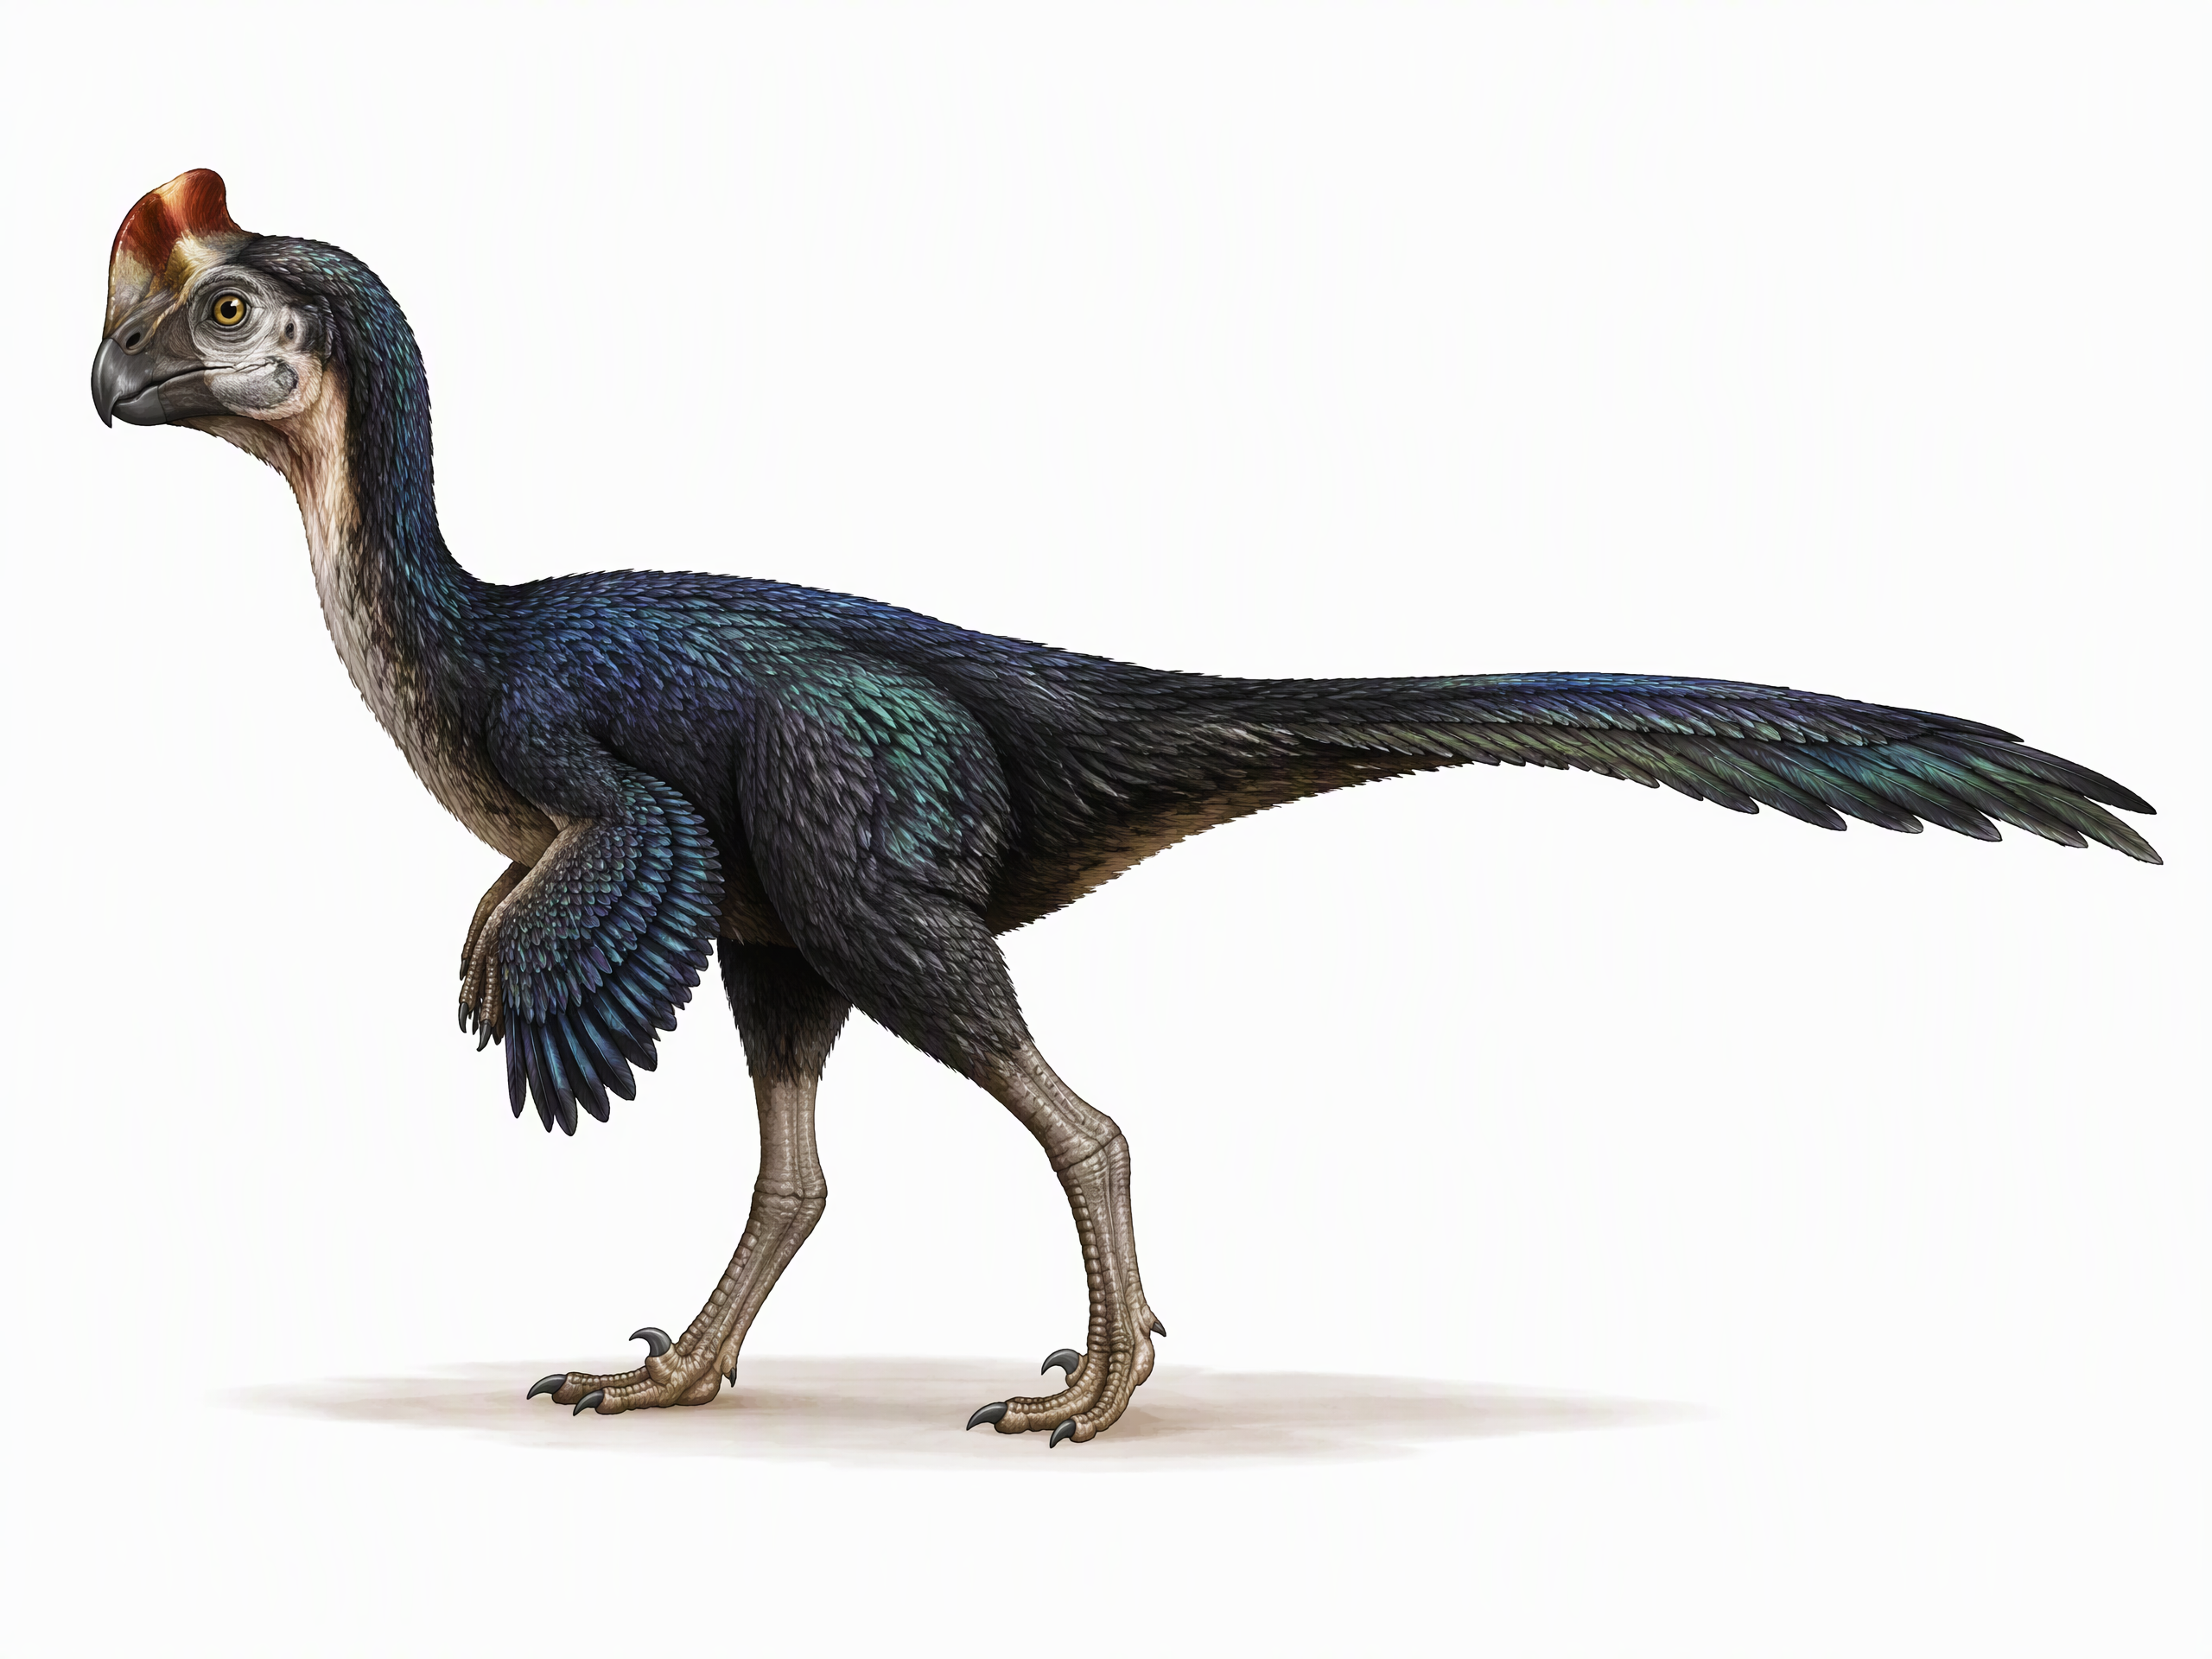
名字意为"蛋贼",因首个化石发现于一窝原角龙蛋上,古生物学家以为它在偷蛋吃。后来在同一类型蛋中发现了窃蛋龙胚胎——它不是在偷蛋,而是在保护自己的蛋!全身可能有羽毛,喙状嘴,头上有冠饰。大概率是杂食性或吃硬壳食物(贝类、坚果、蛋)。
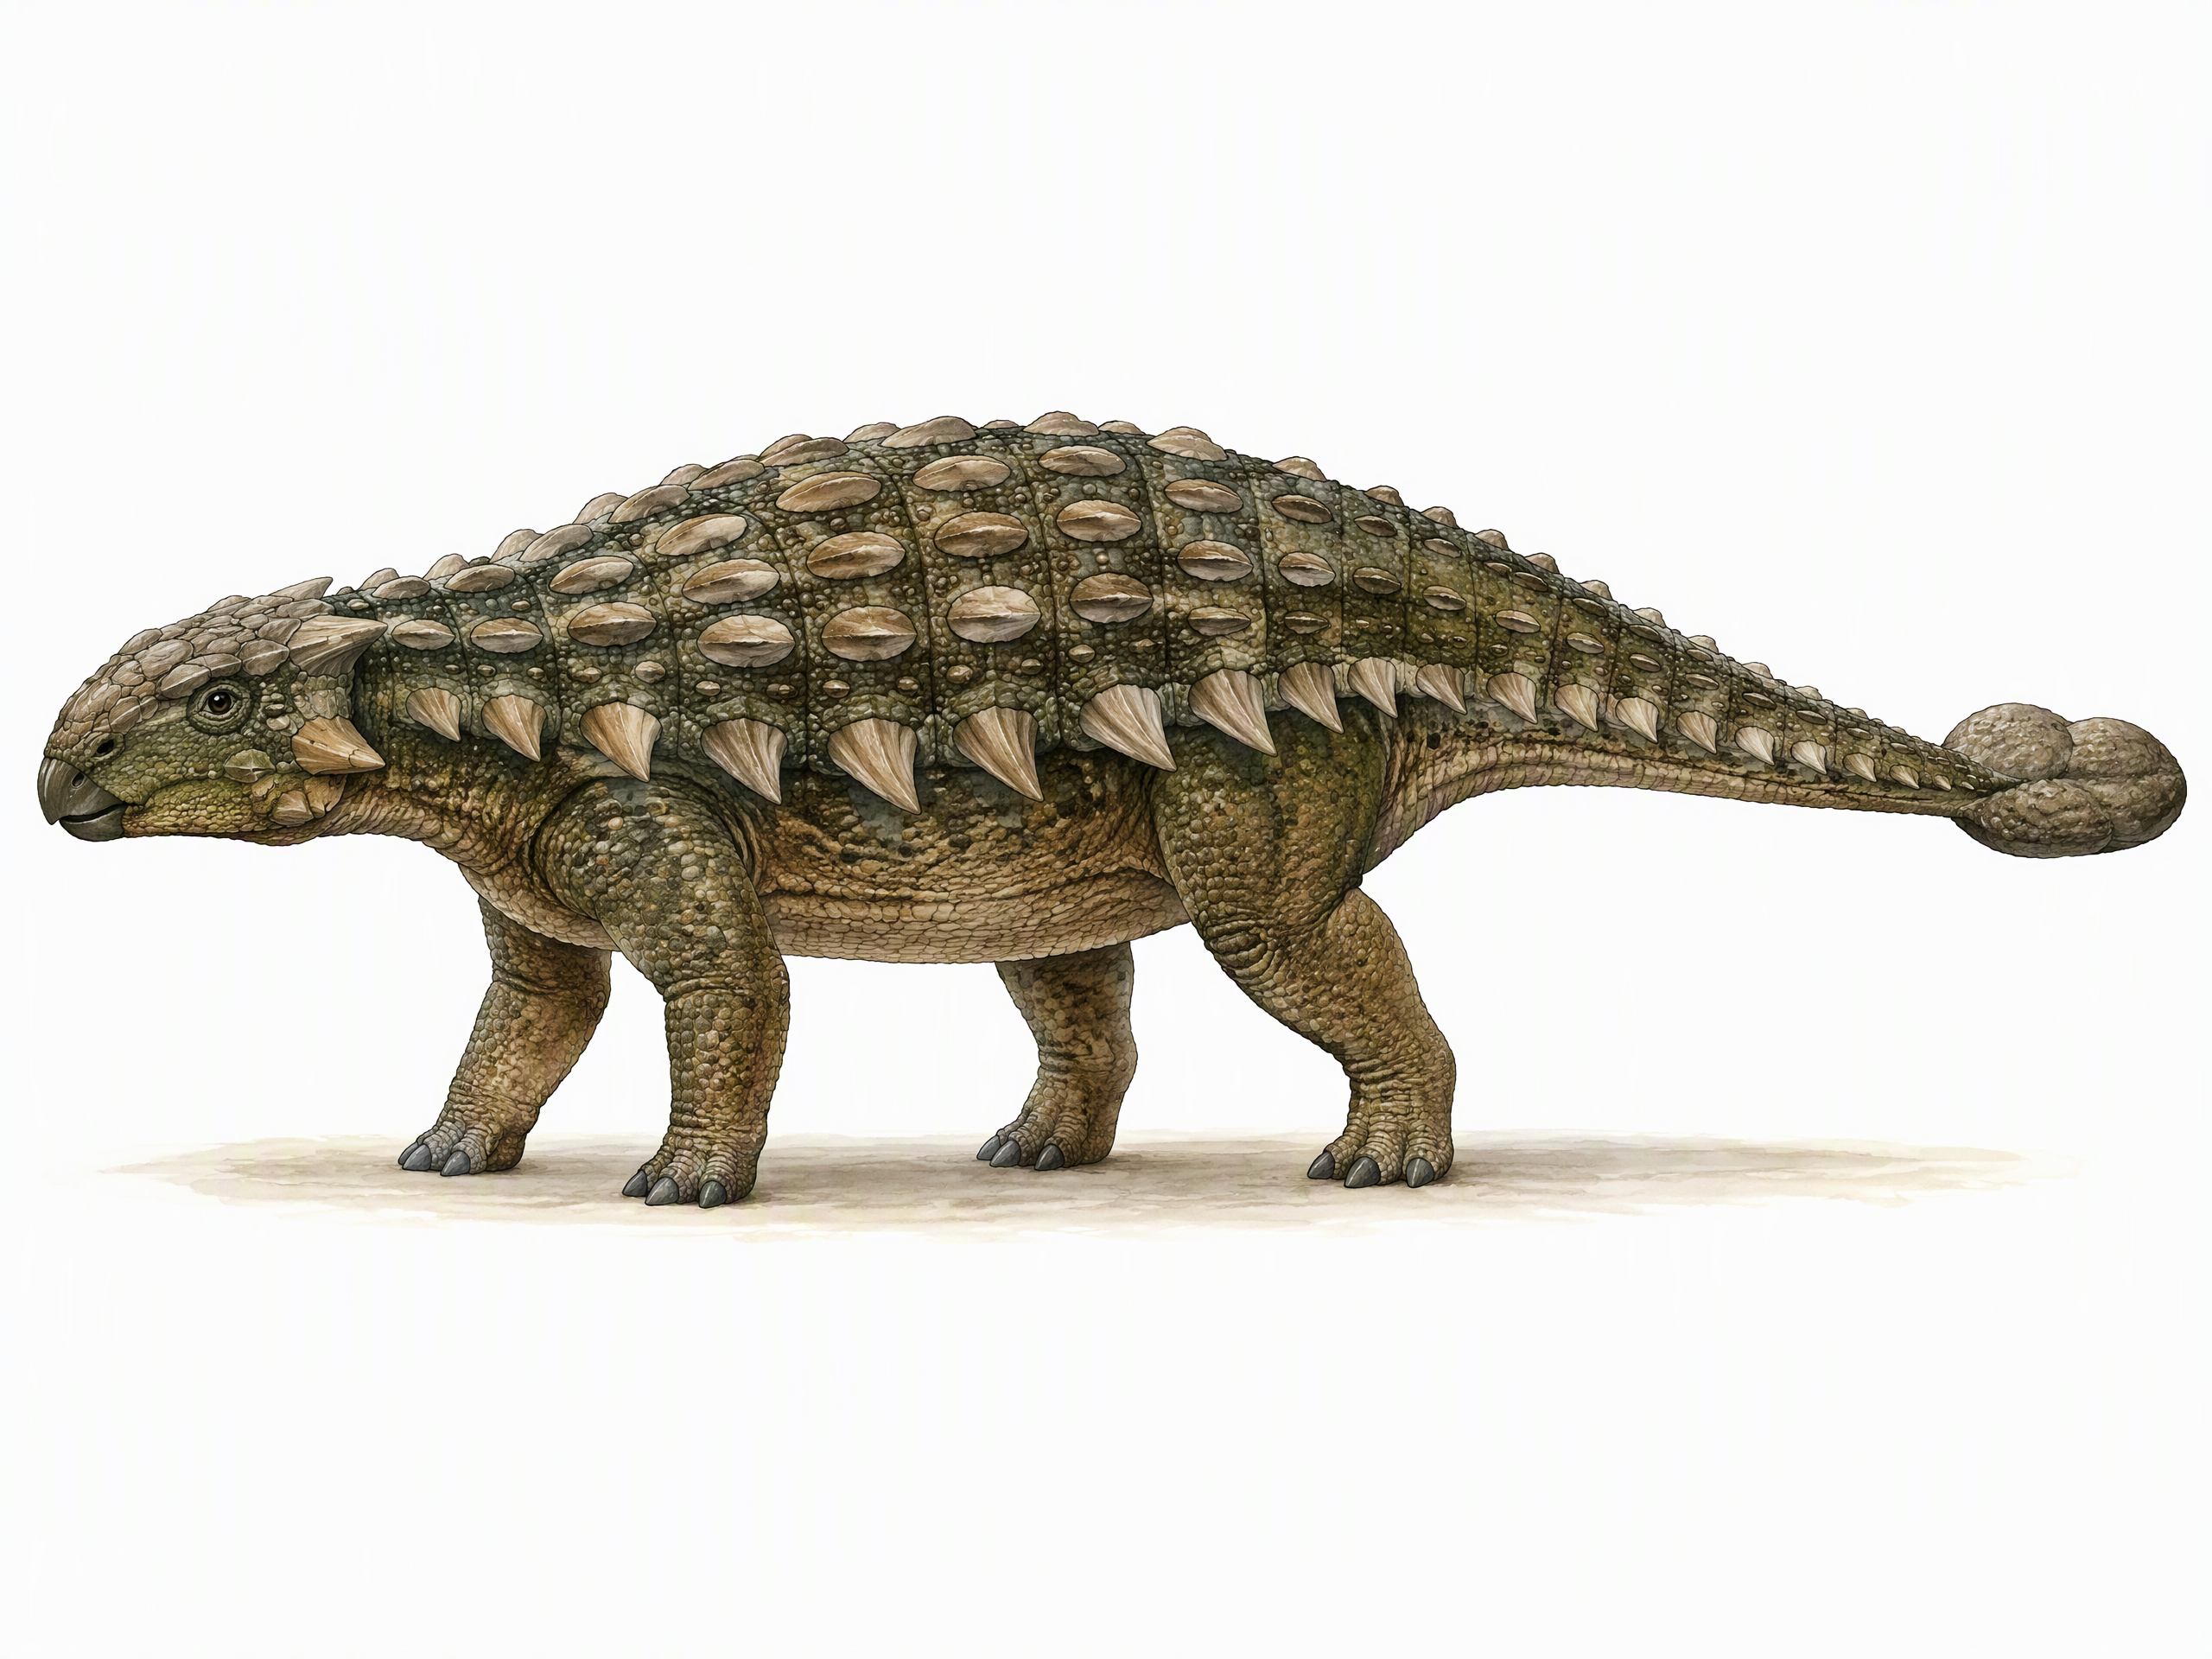
甲龙科的典型代表,比甲龙属出现更早。体长约5-6米,全身装甲更完整——连眼睑都有骨板保护。尾锤较大且肌肉附着更强。身体低矮宽阔,四肢粗壮,适合与体型较扁的植食恐龙一起在低处采食。化石数量在甲龙类中最多,说明它在白垩纪晚期非常常见。
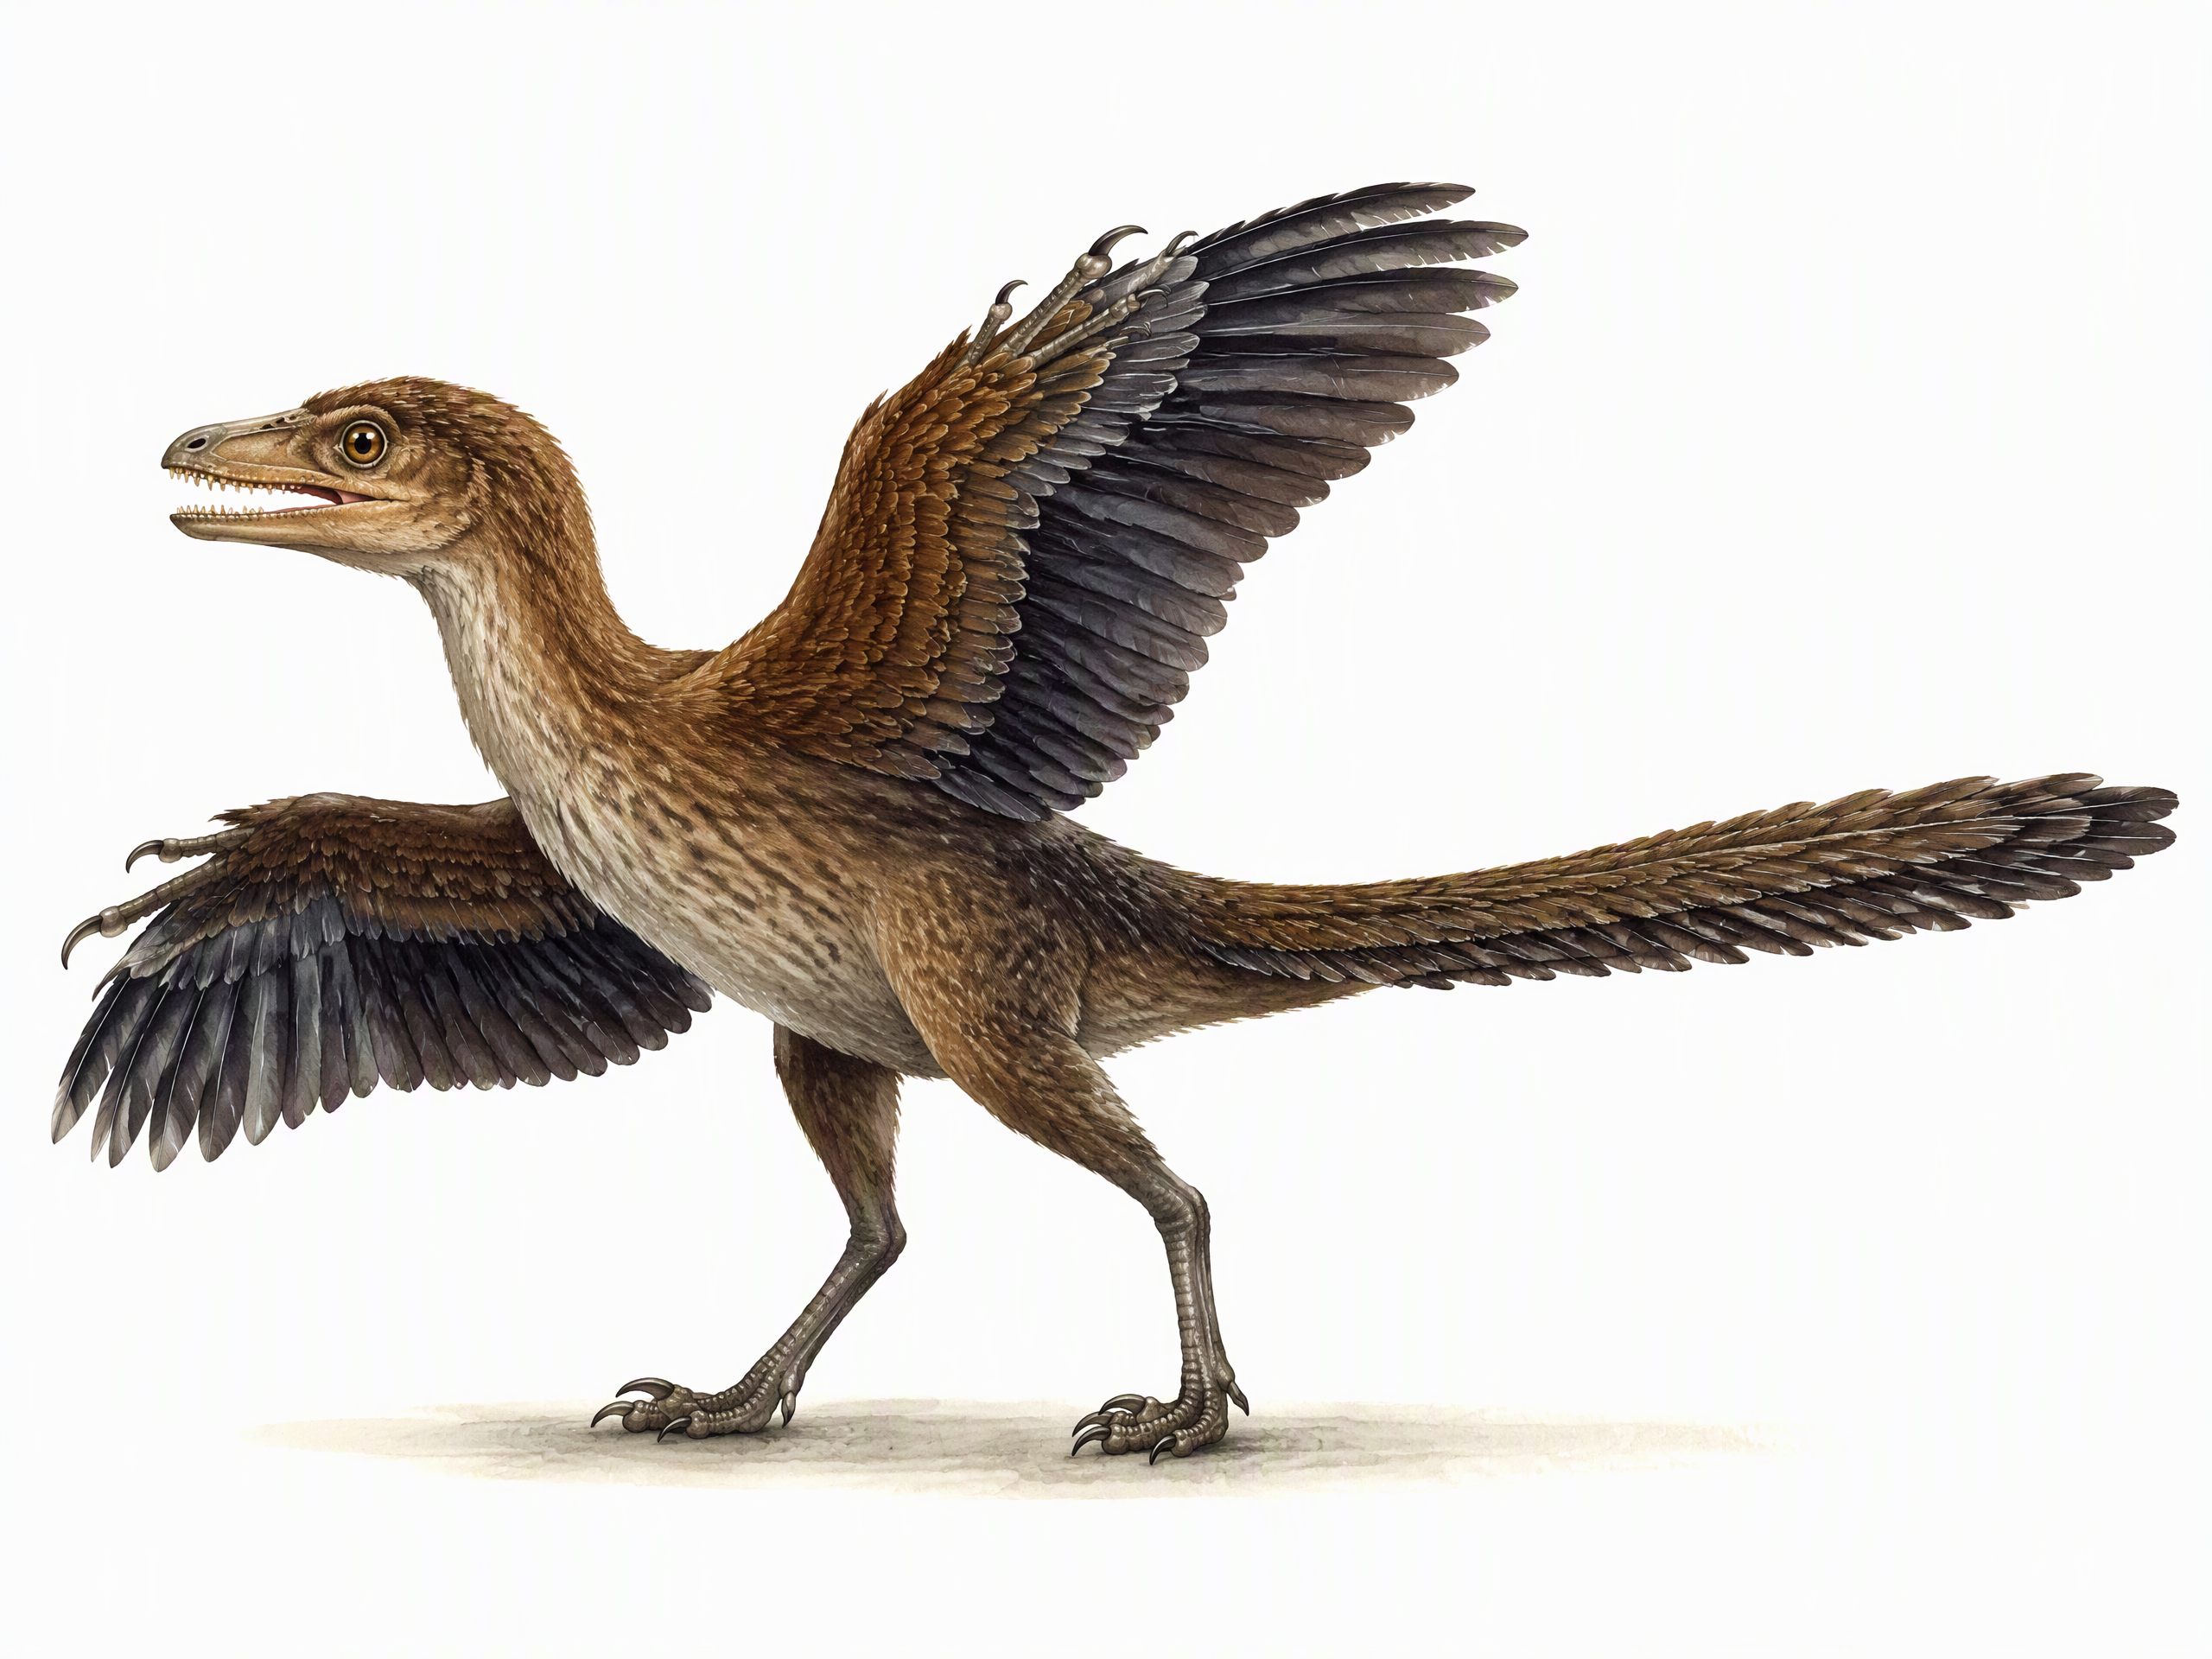
1861年在德国索伦霍芬石灰岩中发现,是恐龙向鸟类演化的"缺失环节"。有羽毛和翅膀,但也有牙齿、长尾骨和爪指——典型的"半龙半鸟"。体长约0.5米,可能不太会飞,而是在树林间滑翔或跳跃。它的发现为达尔文进化论提供了关键证据,至今仍是古生物学的"圣杯"化石。
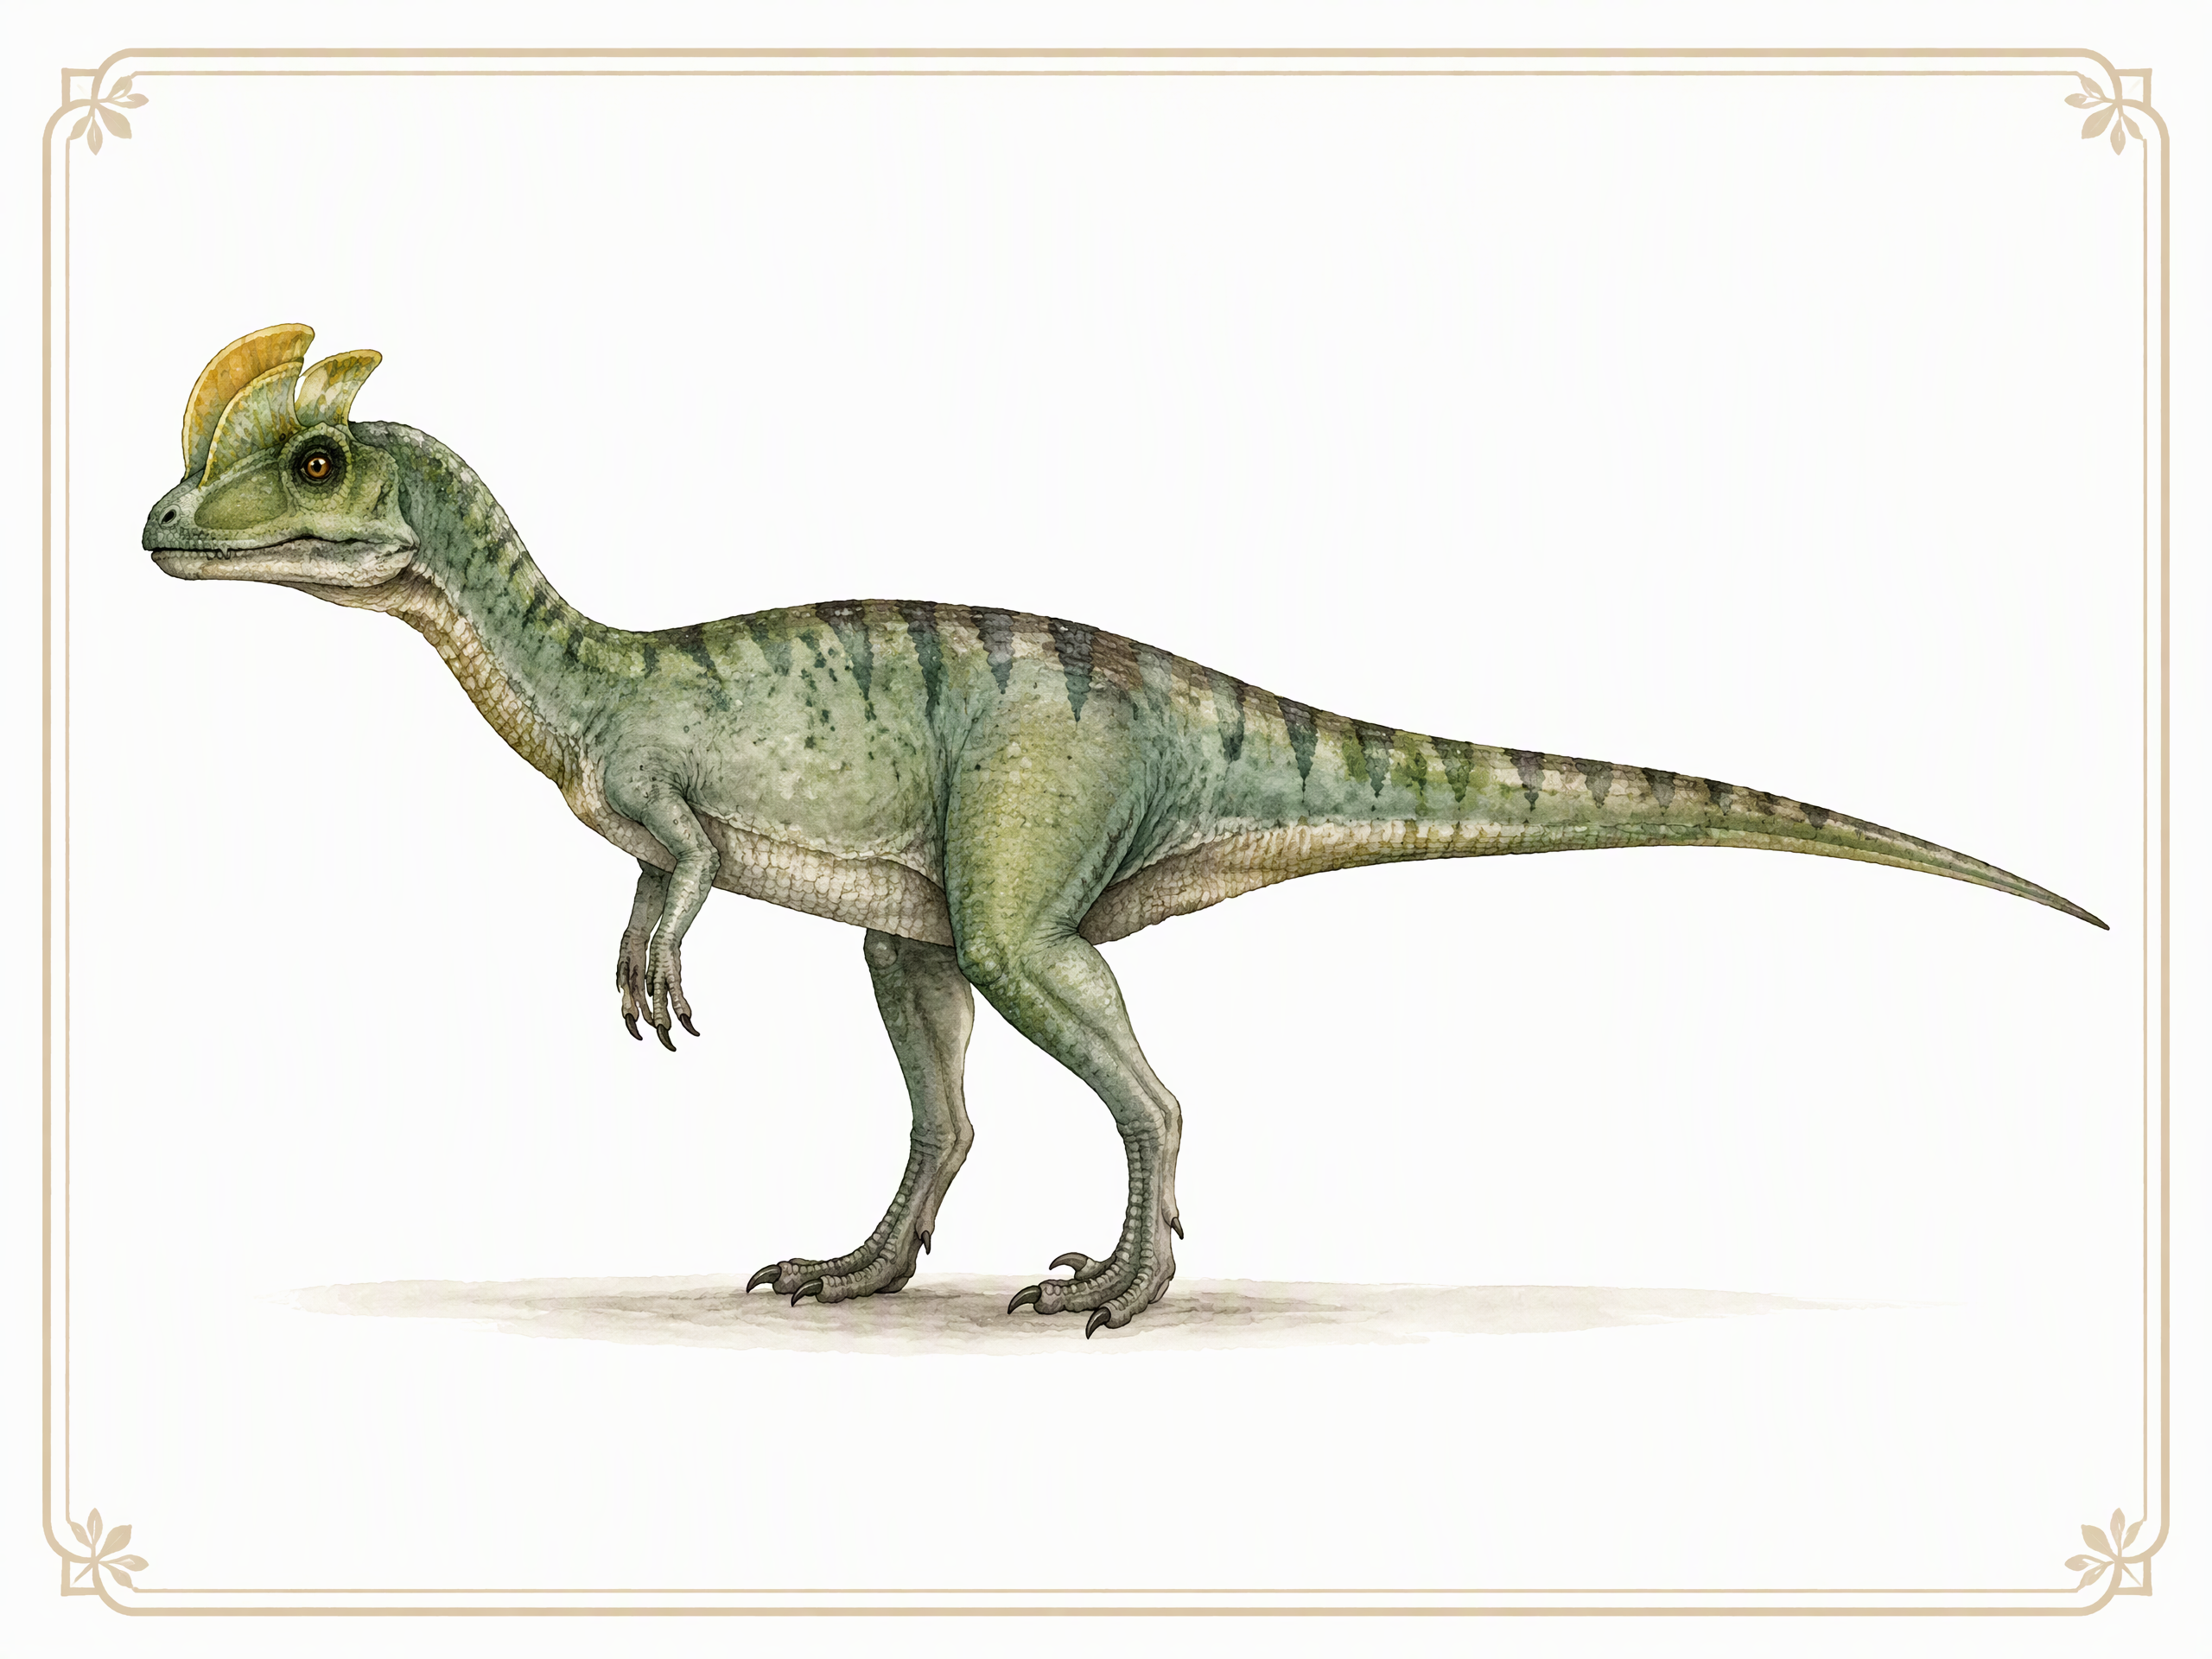
侏罗纪早期肉食龙,头上有一对半月形薄骨质冠饰。体长约6-7米,是最早的大型兽脚类之一。电影《侏罗纪公园》虚构了它"喷毒液"和颈部有褶皱"颈伞"——实际上无任何化石证据支持这些设定。前肢有力,牙齿细长,可能捕鱼或猎杀小型植食恐龙。
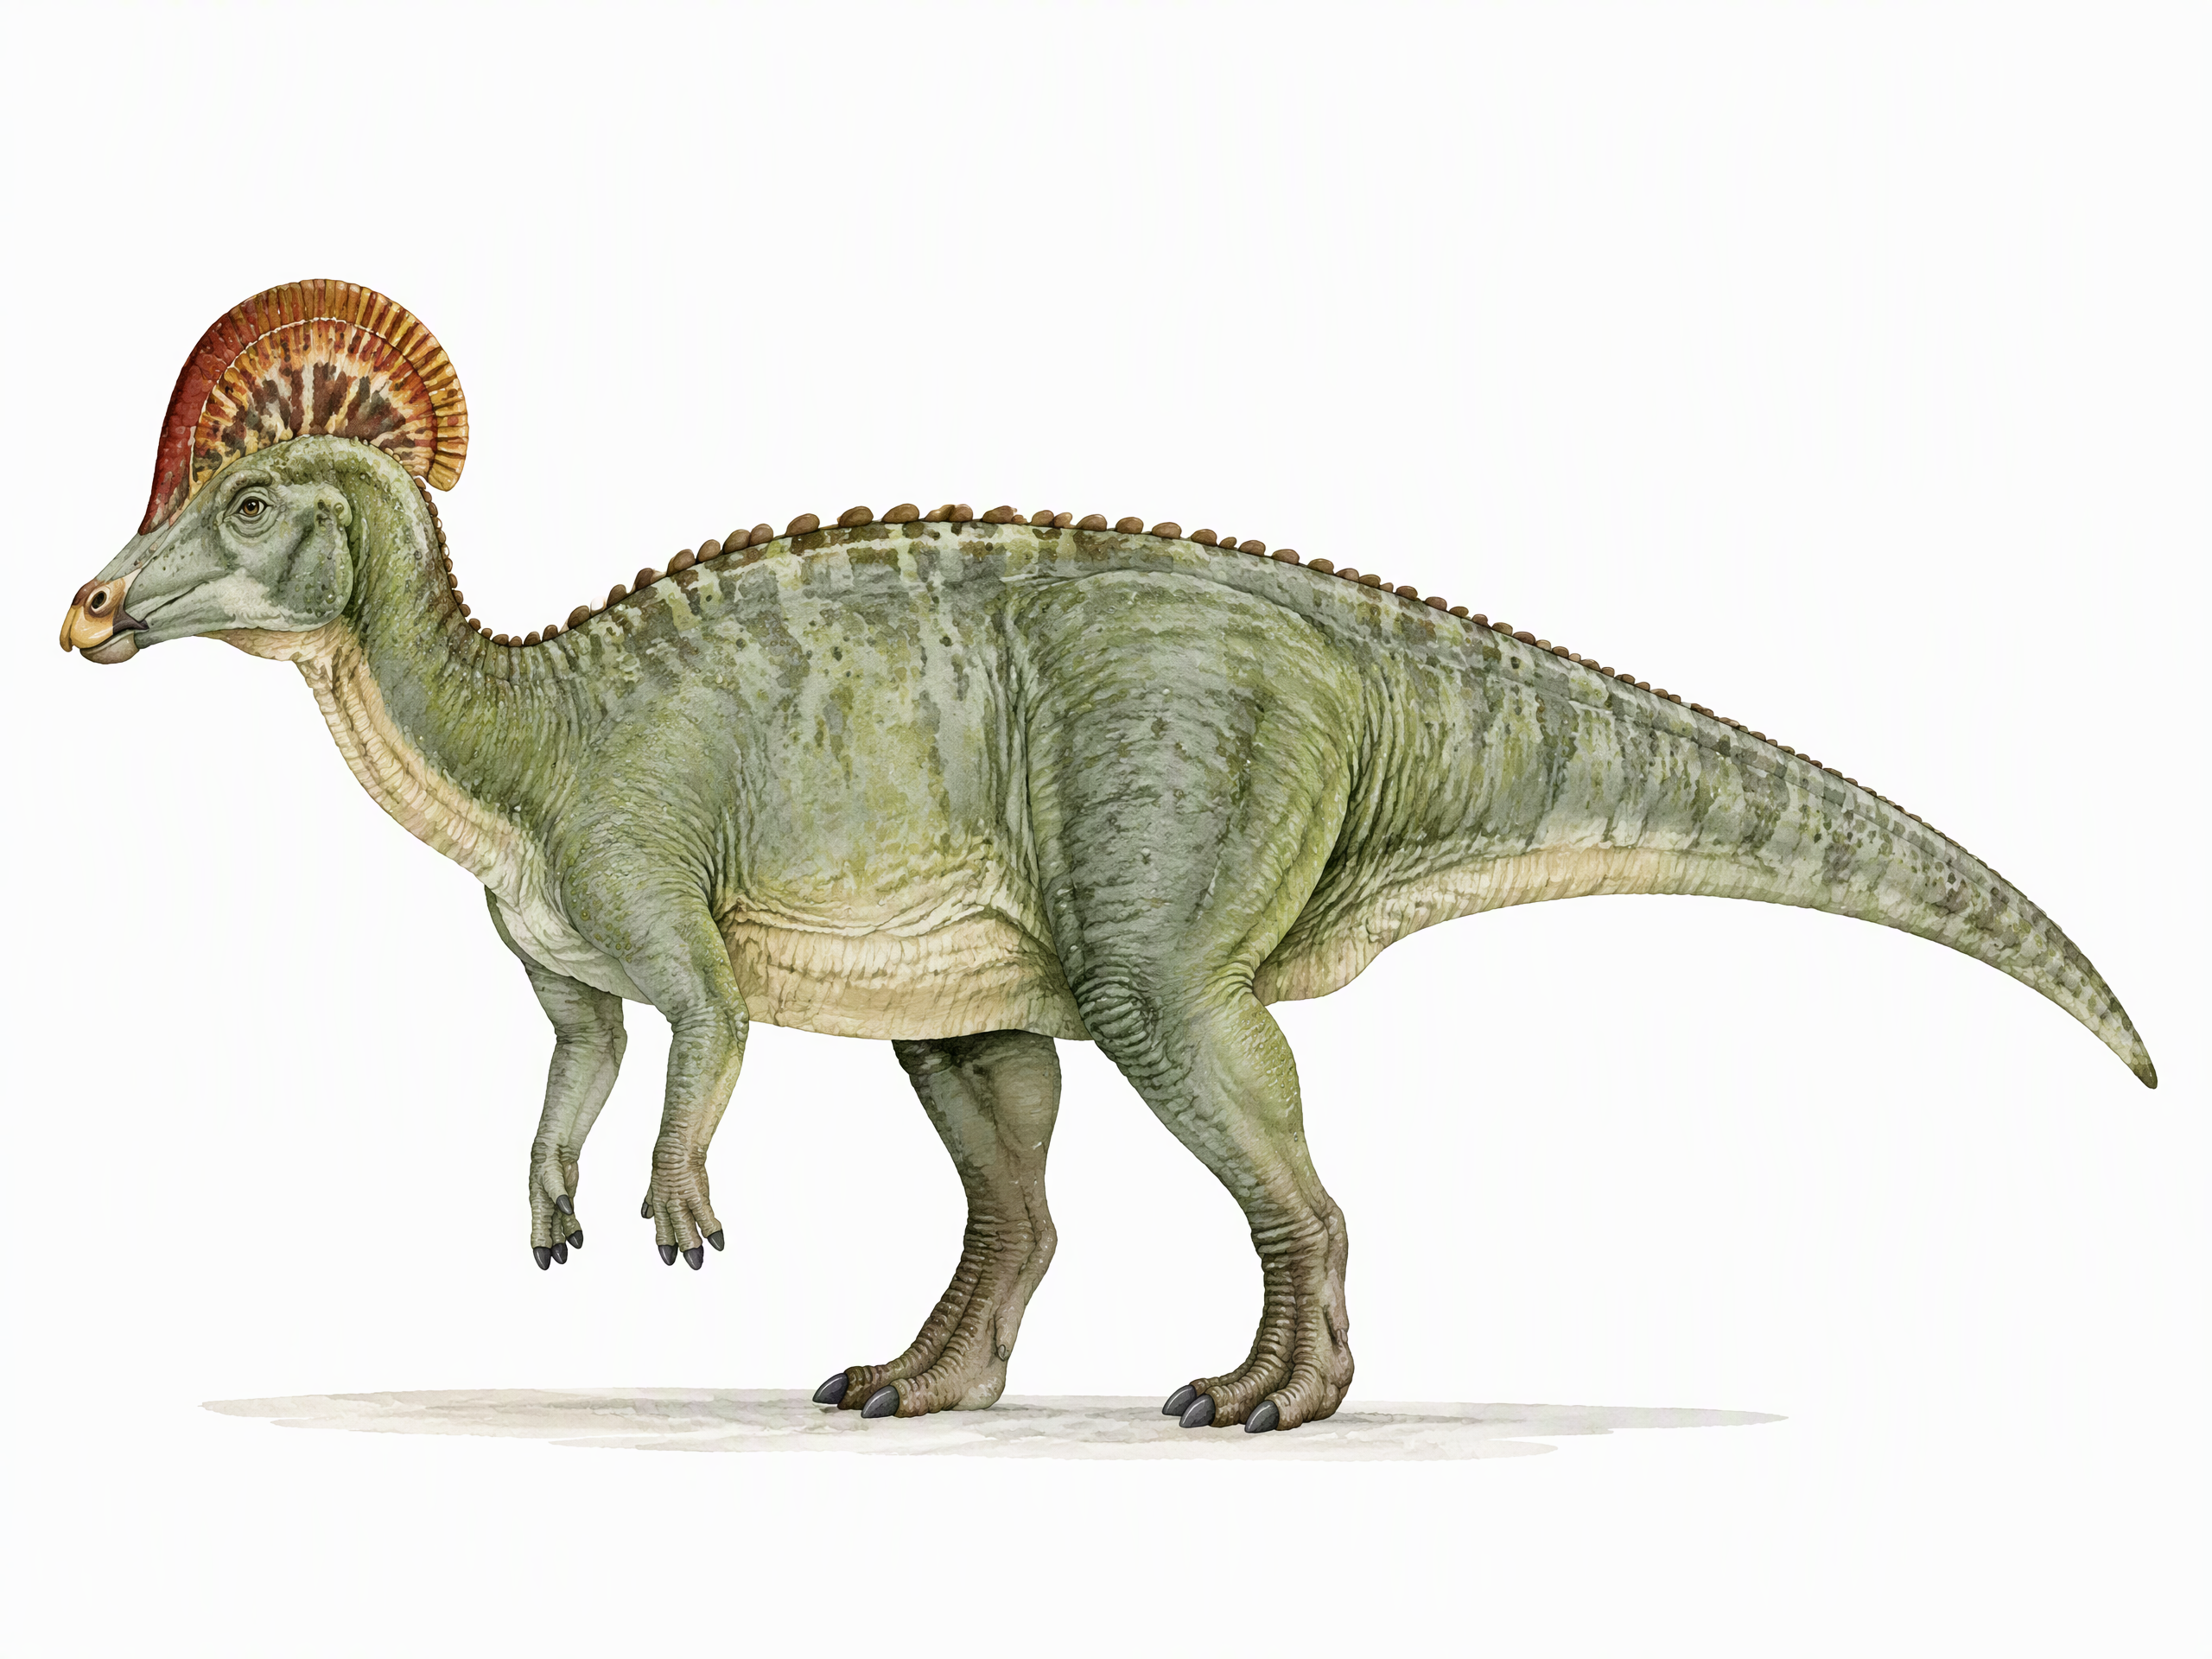
白垩纪末期鸭嘴龙,头顶有半圆形盾牌状冠饰(像古希腊科林斯头盔)。冠内部中空,与鼻腔相通,声学功能与副栉龙类似。体长约9米,在加拿大化石非常丰富。皮肤印痕化石显示它有细密的鳞片和可能的皮肤花纹。冠的形状在雌雄和年龄间可能差异显著。
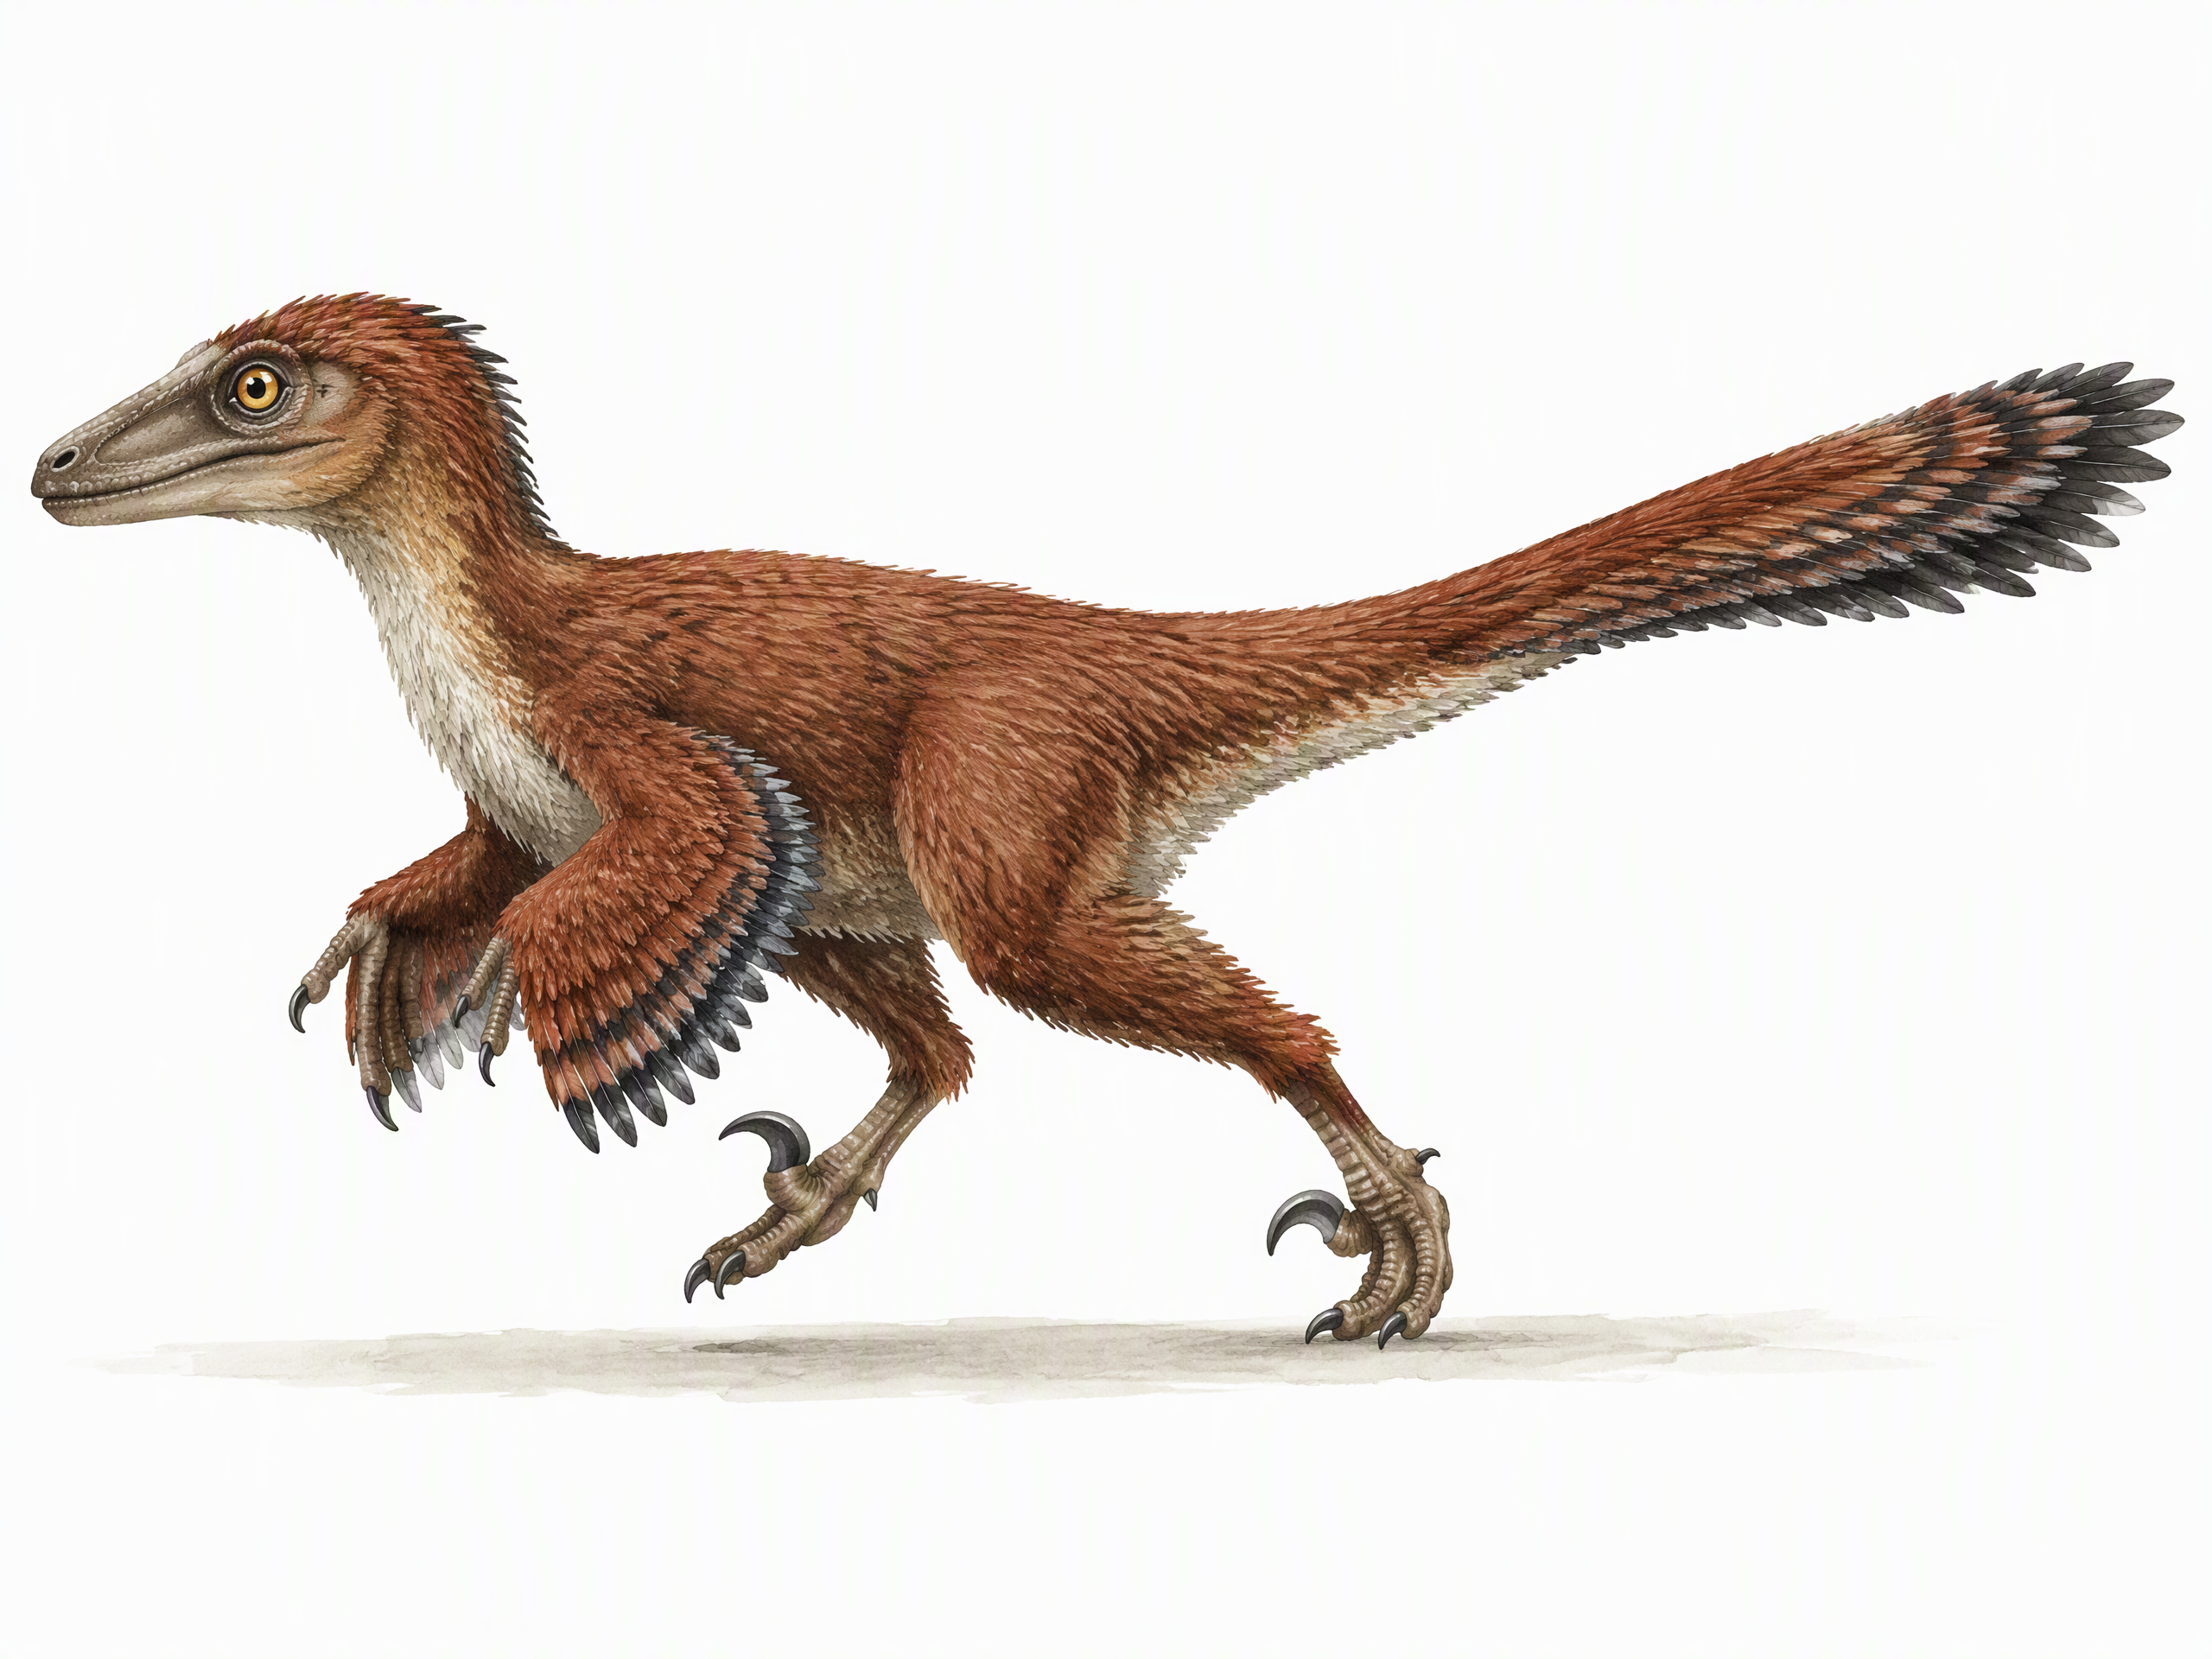
迅猛龙的"大哥",体长约3-3.5米,体重约70-100公斤。脚趾镰刀爪长约12厘米。1969年奥斯特罗姆描述恐爪龙后引发"恐龙文艺复兴"——他提出恐龙是活跃的温血猎手而非迟钝的冷血爬虫,彻底改变了恐龙学的走向。推测群体捕猎,猎物是体型较大的植食恐龙。
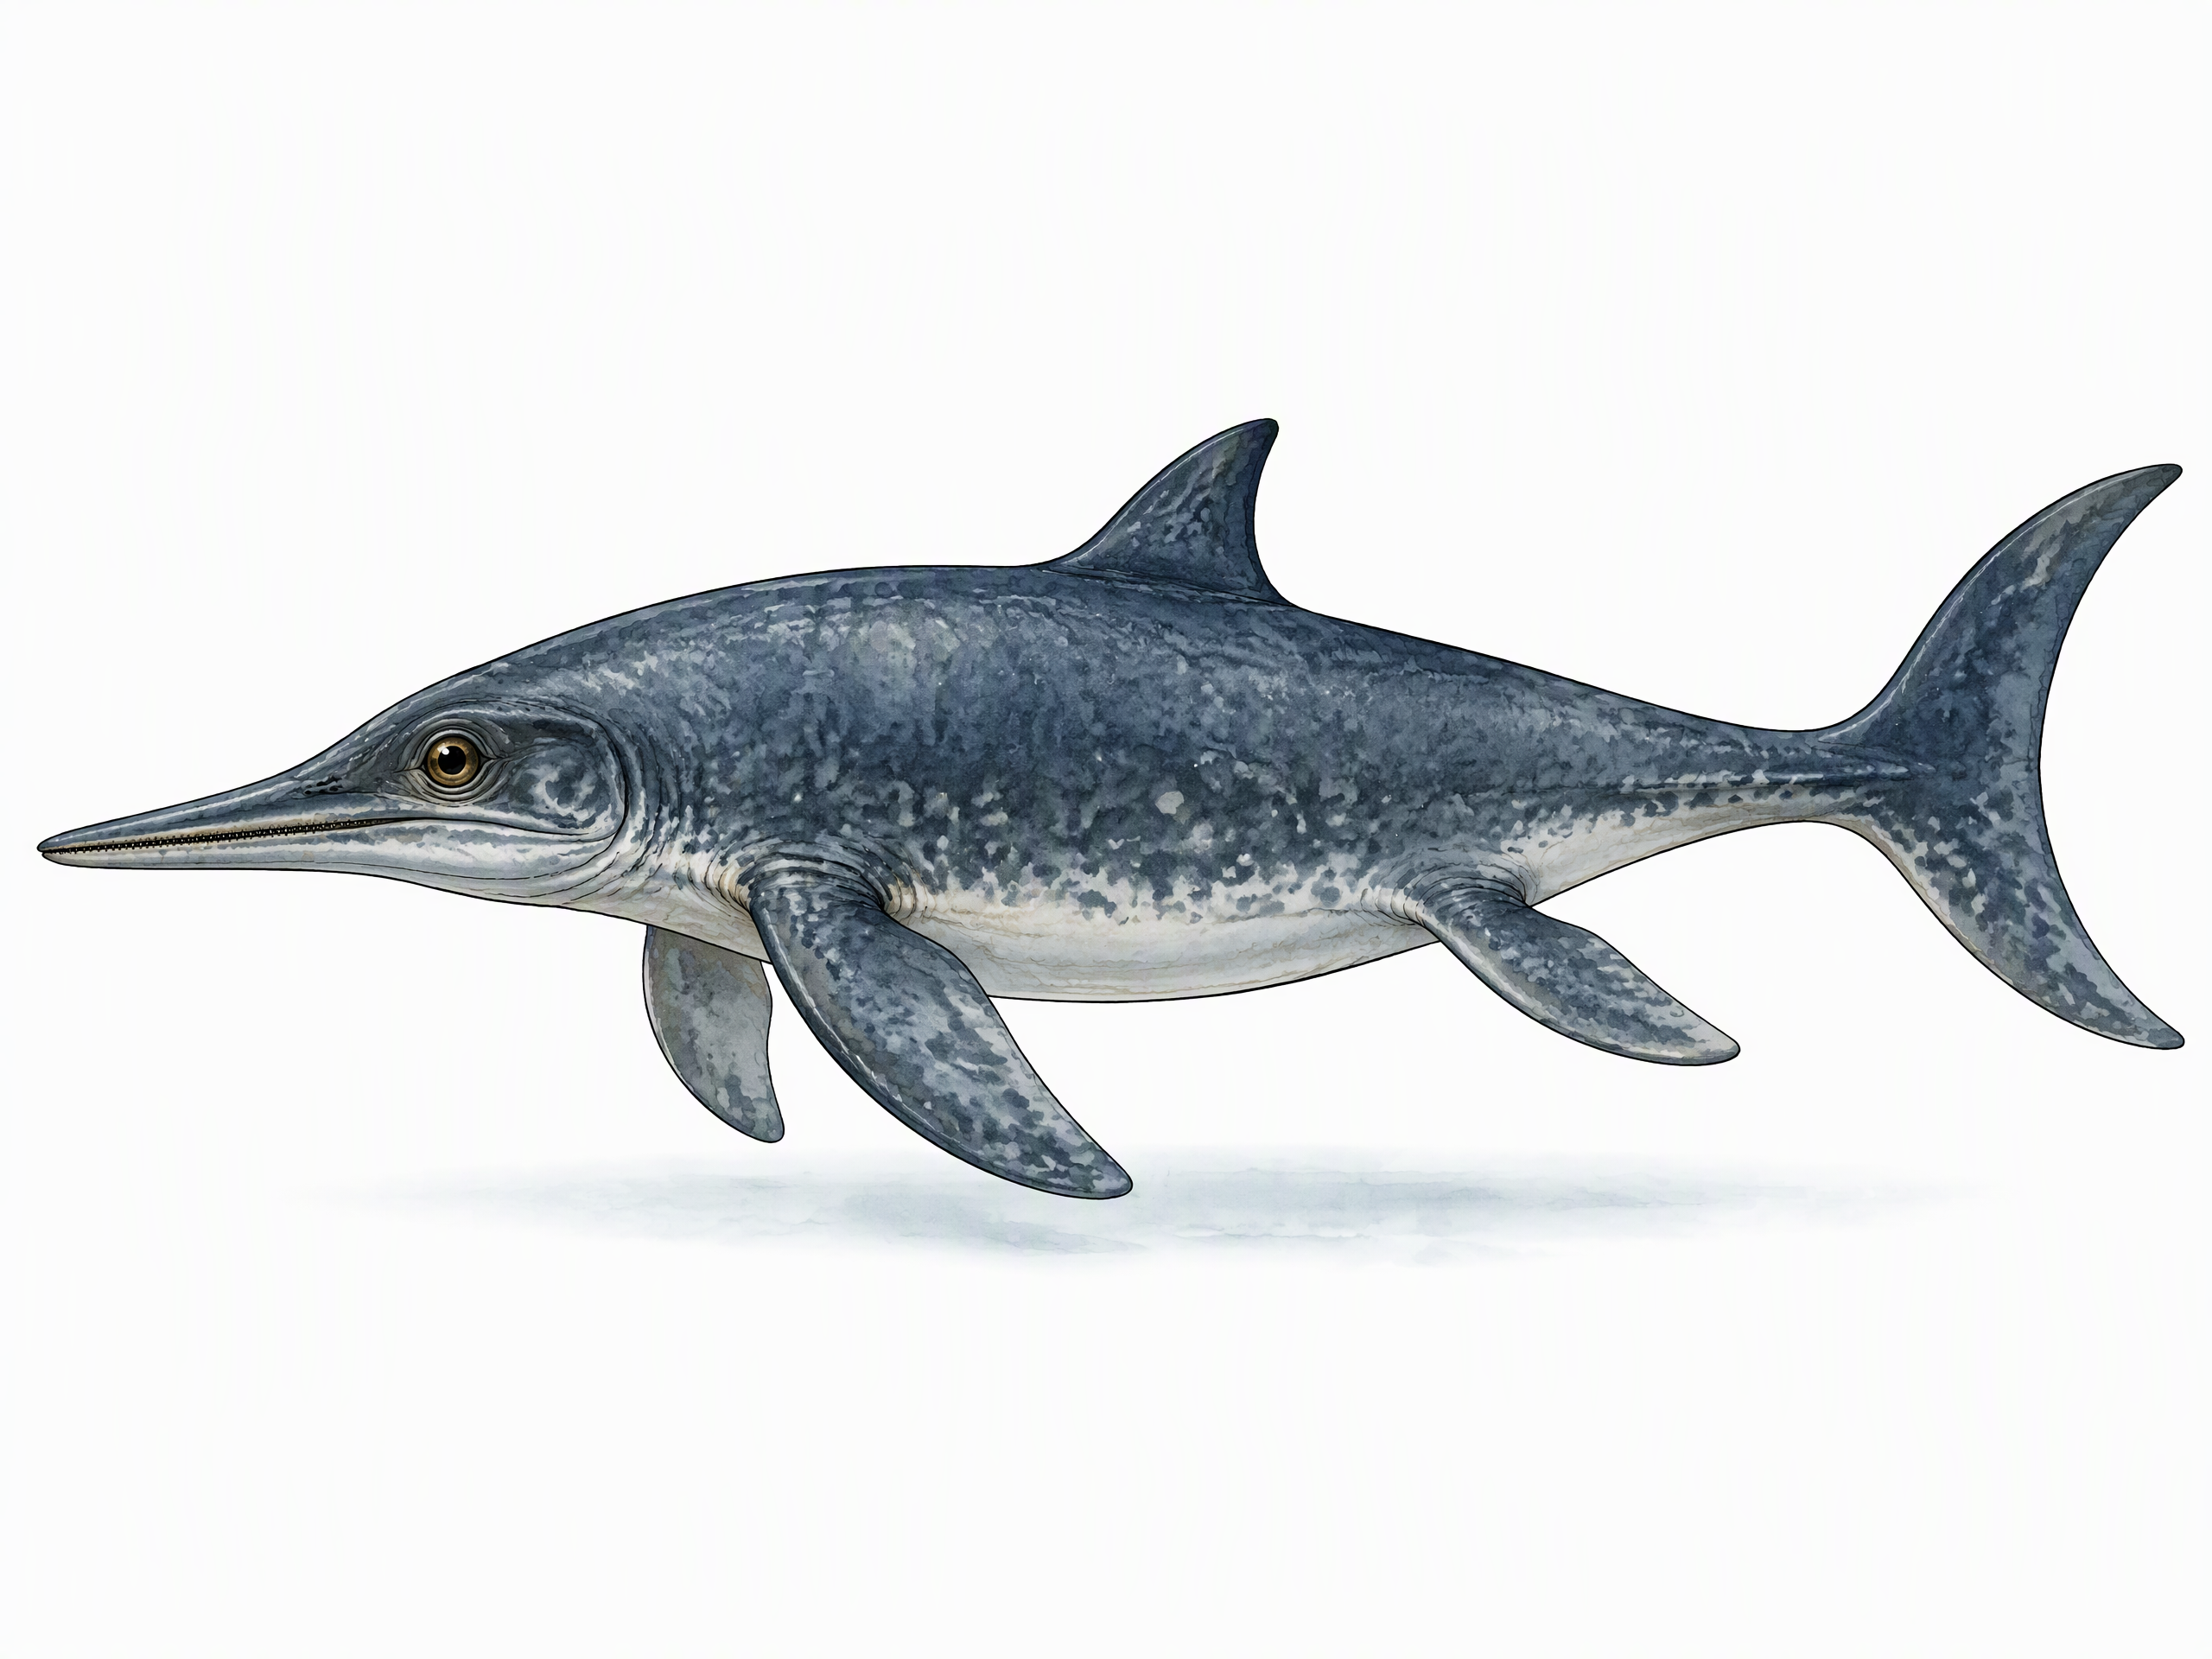
与恐龙同时代的大型海洋爬行动物,外形极像海豚——这是"趋同演化"的经典案例。流线型身体、背鳍、四个桨状鳍肢、大眼睛(有些种类眼球直径达25厘米,是已知最大眼球)。直接产下活幼崽(不产卵),体长2-4米(巨龙属可达20米以上)。胎生鱼龙化石定格了分娩瞬间。
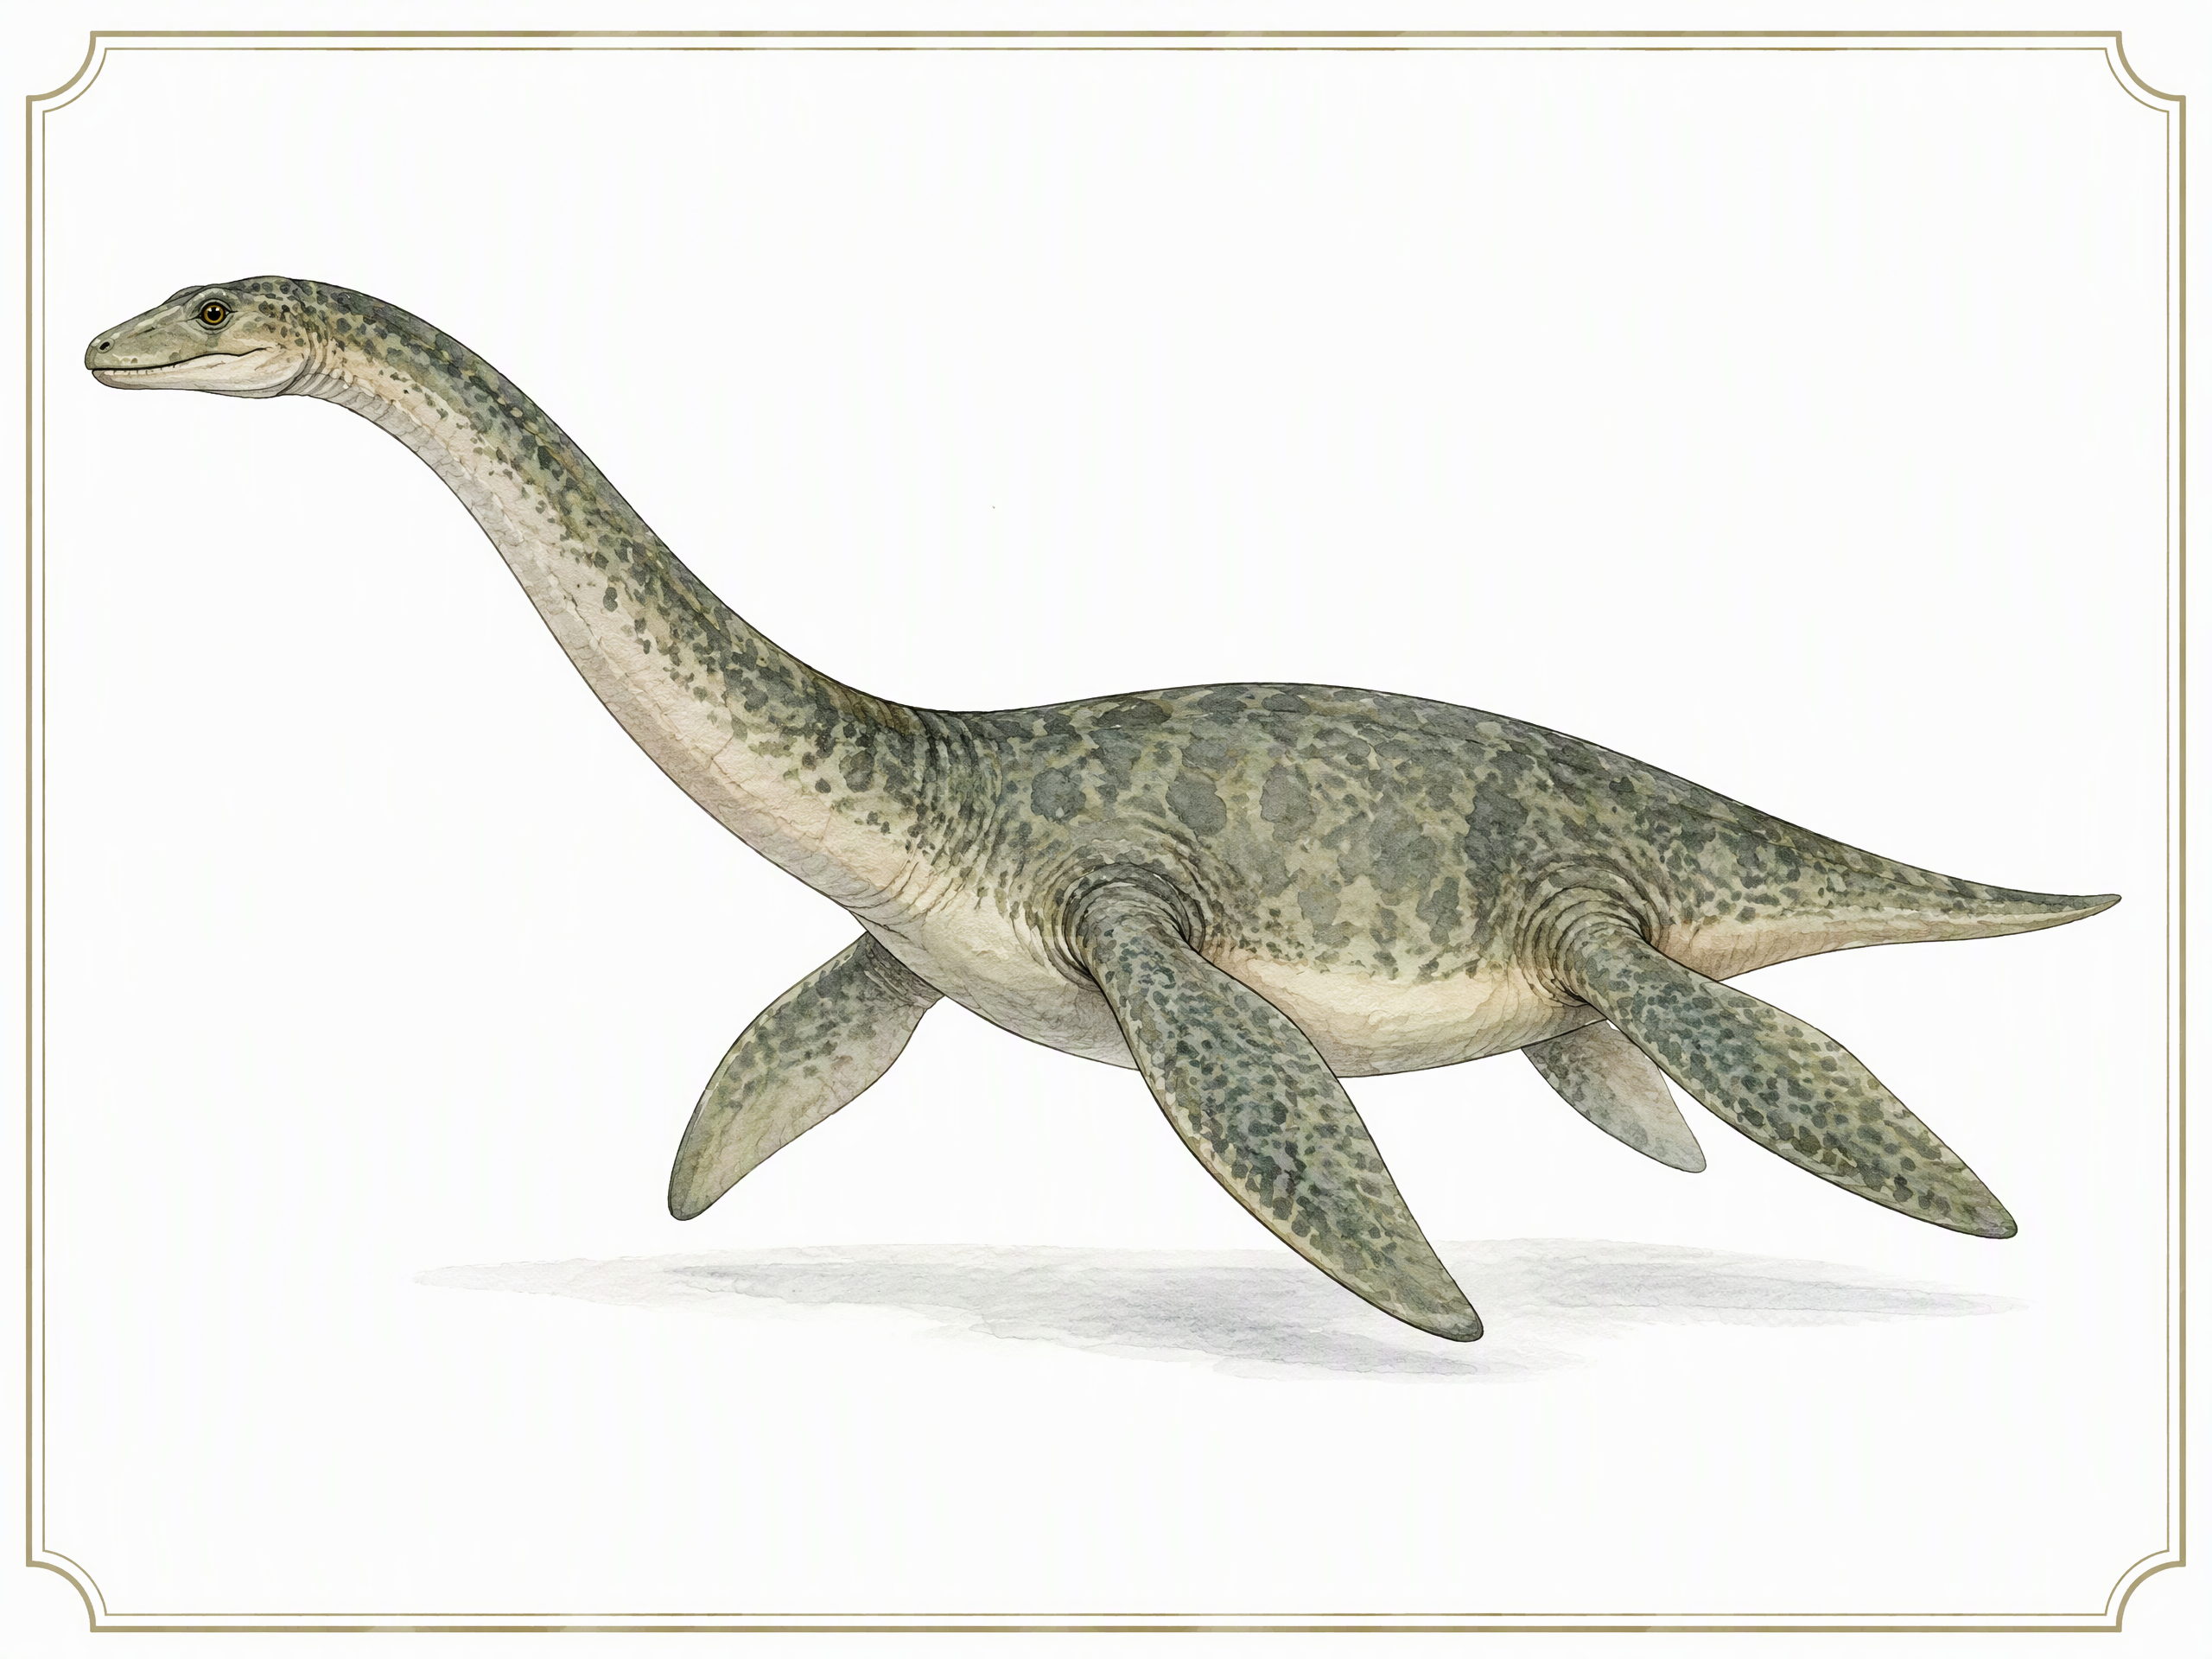
中生代海洋中的标志性爬行动物,小头、极长脖子、宽体、四个桨状鳍肢。长颈可达体长一半以上,推测采用"侧扫"式伏击捕鱼——身体静伏,长脖子快速刺入鱼群。尼斯湖水怪的原型推测就是蛇颈龙,尽管该目已在6600万年前灭绝,与恐龙同时消失。最大种类(薄片龙)体长达14米。
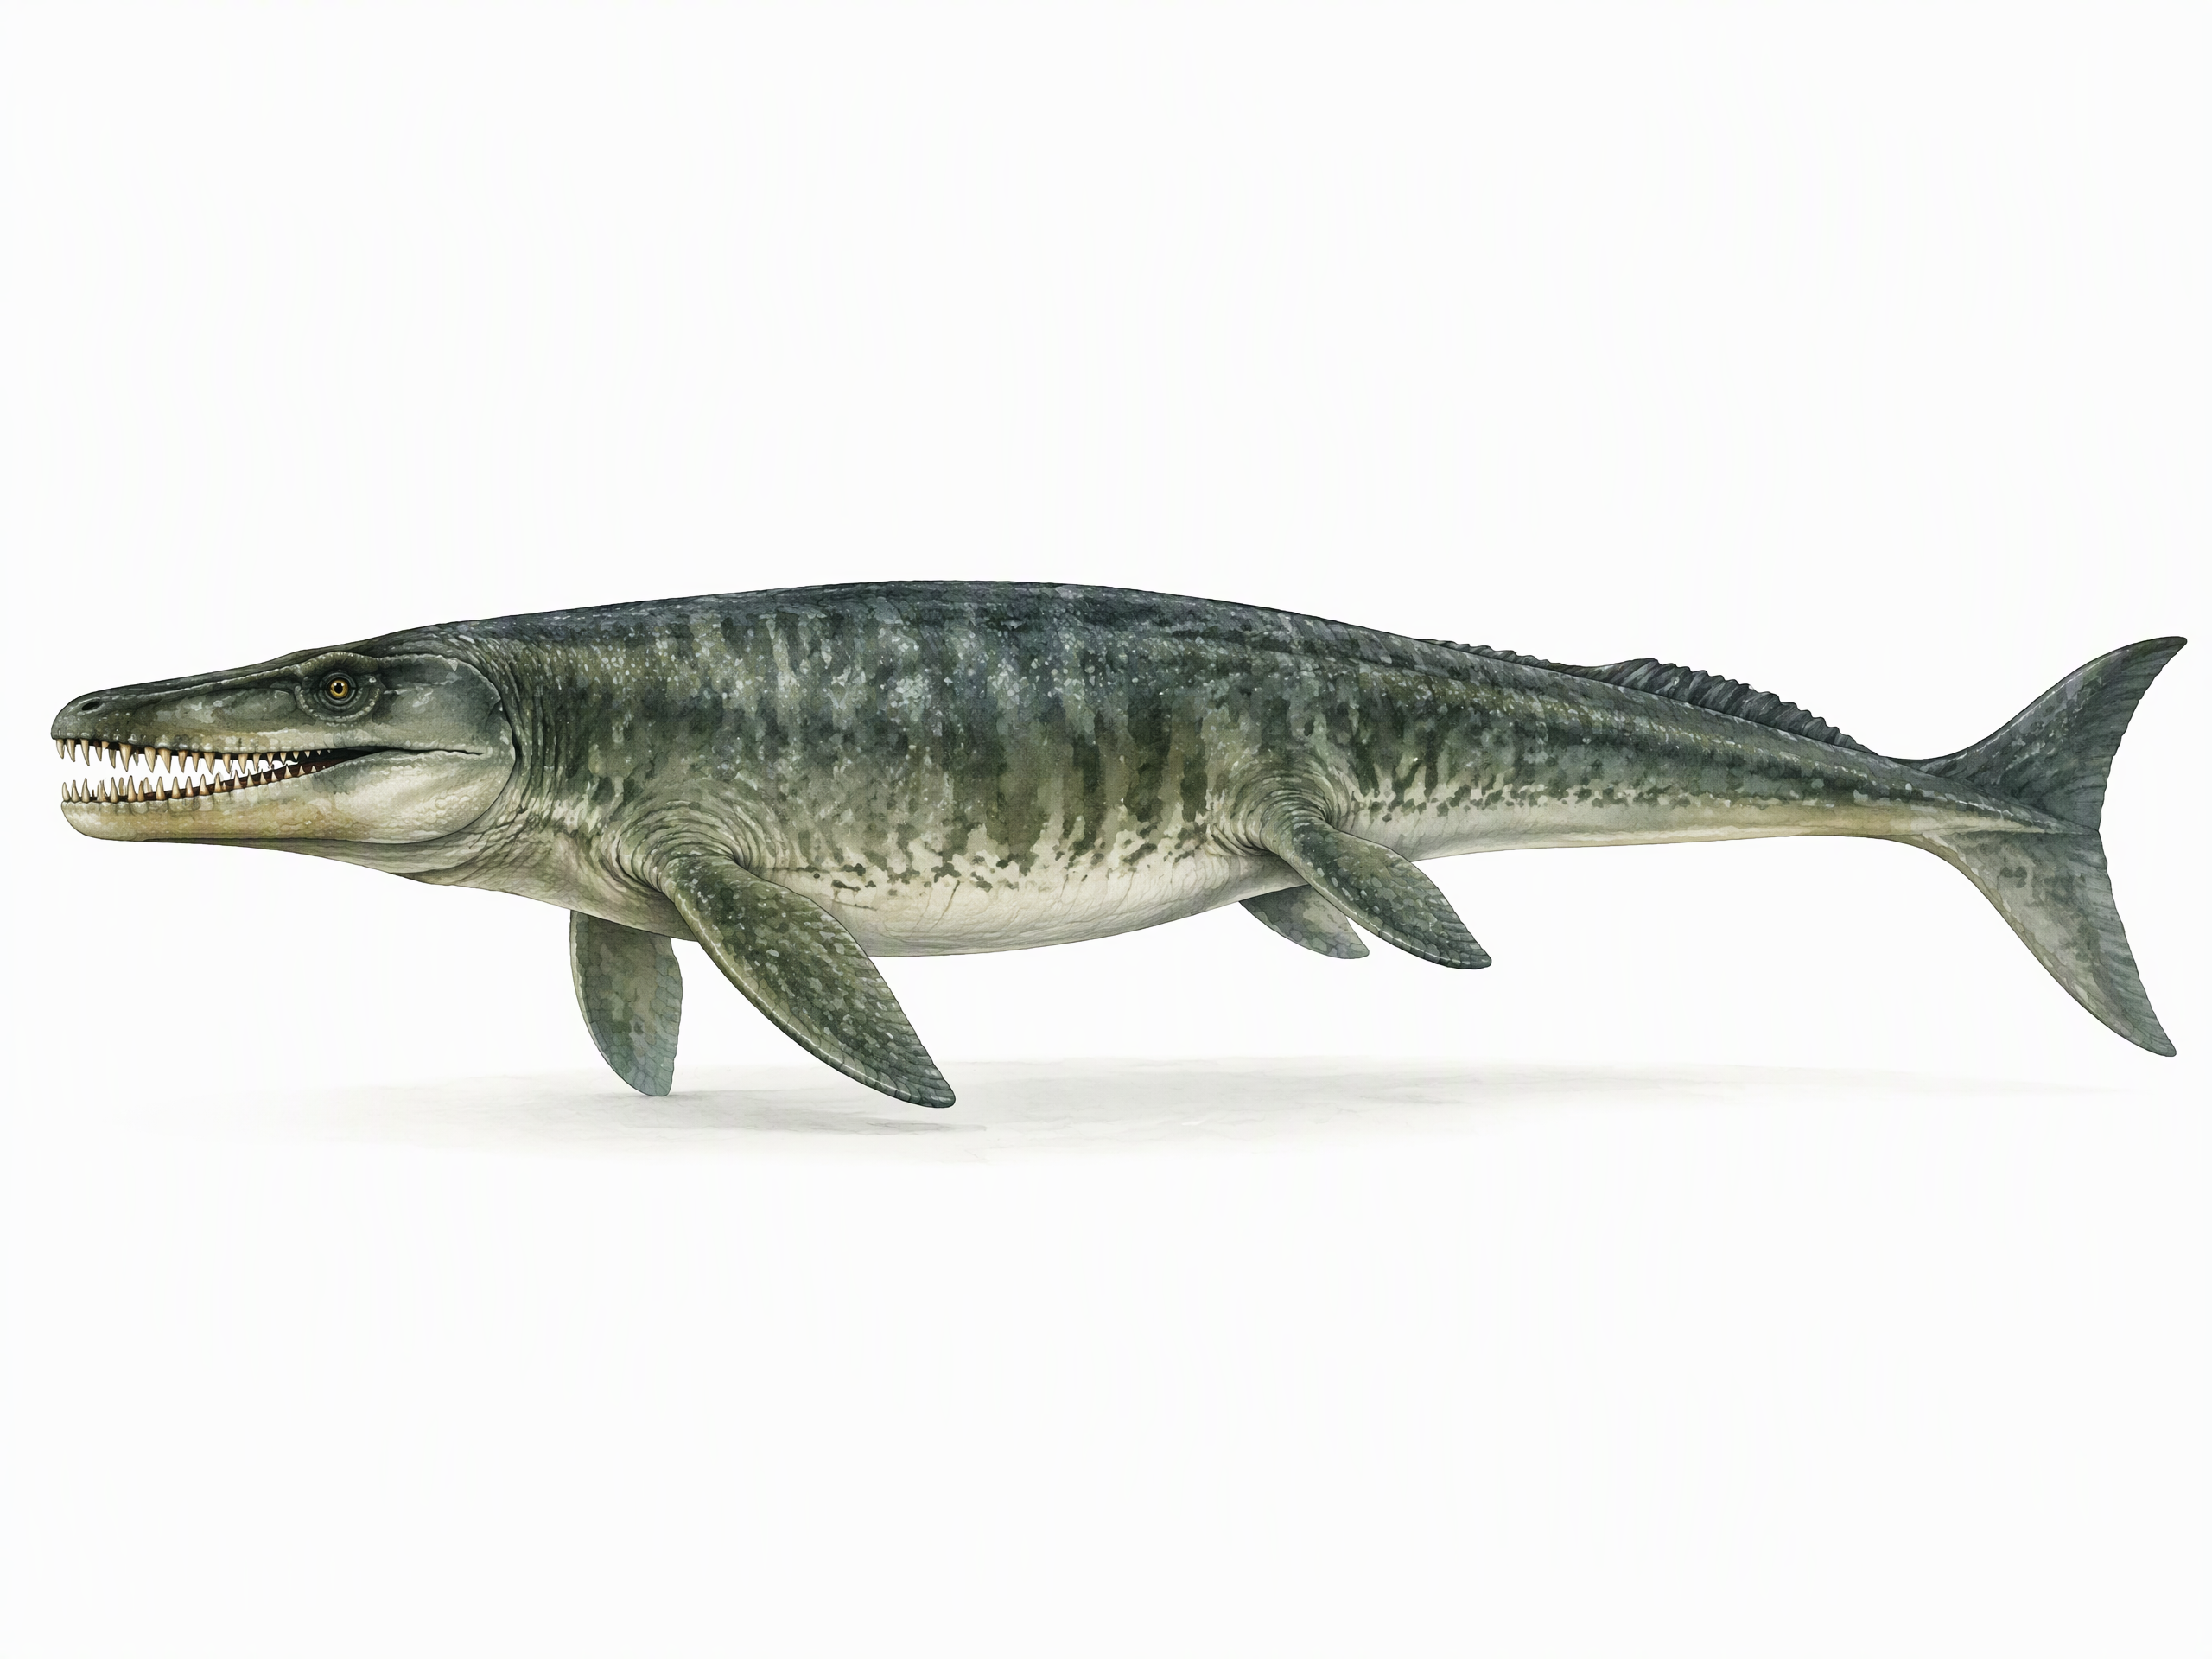
白垩纪末期海洋顶级掠食者,体长可达15-17米。由陆地蜥蜴在几百万年内迅速演化成海洋巨兽——进化史上最快速的转变之一。四肢变成桨,尾巴变成巨大鱼尾。颌部有"双层牙齿"——口腔顶部也有齿,猎物一旦被咬住就插翅难逃。电影《侏罗纪世界》中一口吞掉暴虐霸王龙的正是沧龙。
恐龙像现代鸟类和鳄鱼一样产卵筑巢。慈母龙巢群表明它们成群回固定地点繁殖,父母照顾幼龙直到能自行觅食。窃蛋龙化石被发现以"趴窝"姿态覆盖在蛋上方——与现代鸡孵蛋姿态几乎一致。鸭嘴龙和角龙幼体化石关节未愈合说明它们无法自行觅食,必须依赖父母喂食。
一些证据暗示大型肉食恐龙可能群体捕猎:多个恐爪龙化石与一个腱龙化石近距离共存(蒙大拿);南方巨兽龙骨骼与阿根廷龙幼体骨骼发现于同一化石点;脚印行迹显示多个兽脚类保持一致行进方向。但争议很大——这些"群"也可能是先后分别来吃的食腐者。
恐龙沟通证据来自头冠结构。副栉龙和冠龙的中空头冠是天然的共鸣器,能发出低频号角声。鸭嘴龙类可能有多种叫声——吹气、隆隆、咕噜。角龙类的头盾、甲龙的骨板、厚头龙的圆顶都有展示功能,类似现代孔雀尾屏或狮子鬃毛。羽毛的颜色花纹也用于求偶展示。
脚印行迹证据显示大型植食恐龙(如蜥脚类和鸭嘴龙)成群移动,可能进行季节性迁徙——类似现代角马。一处加拿大化石点发现了同一方向的数百个脚印,可能是迁徙路径。植食恐龙与肉食恐龙之间可能存在"跟随迁徙"模式——类似现代狮子跟随角马。
关于霸王龙是"主动猎手"还是"食腐清道夫"长期有争议。反对食腐说的证据:霸王龙腿骨生物力学分析显示能支撑高速奔跑;猎物化石上有霸王龙咬痕愈合的痕迹——说明猎物被咬时还活着逃脱了。现代顶级掠食者(狮子、狼)也会食腐,霸王龙可能是"机会主义"——既猎杀也捡现成的。
植食恐龙防御手段多样:三角龙和戟龙的角用于顶撞;甲龙和包头龙全身装甲+尾锤;剑龙和蜥结龙的尖板/尖刺让攻击者无从下口;厚头龙可能侧面顶撞;小型鸟脚类靠速度和群体警戒;巨大蜥脚类单纯靠体型——长大了几乎没有天敌。
6600万年前,一颗直径约10-15公里的小行星撞击了今天墨西哥尤卡坦半岛的位置,形成了直径约180公里的希克苏鲁伯陨石坑。撞击能量相当于约100万亿吨TNT——是广岛原子弹的100亿倍。证据链包括:全球K-Pg界线地层中异常高浓度的铱元素(地外物质标志)、冲击石英(只有高压冲击才形成)、玻璃微球粒、以及墨西哥湾的巨型海啸沉积物。
印度德干暗色岩在白垩纪末期发生持续数十万年的超级火山喷发,释放大量二氧化碳和有毒气体。一些学者认为火山活动已让生态系统在撞击前"摇摇欲坠",小行星只是"最后一击"。也有学者认为火山活动反而帮助了灭绝后的生态恢复——温暖气候加速了幸存者(如哺乳动物和鸟类)的辐射演化。
所有非鸟恐龙灭绝,但有一支小型羽毛恐龙幸存——它们体型小、食性杂、可能靠吃种子和腐肉度过食物匮乏期,演化为现代所有鸟类。这是进化史最大的运气之一。
白垩纪的哺乳动物体型很小(鼩鼱大小),可能夜行性、穴居、杂食。这些特征恰好是灾难中的生存优势——穴居可避热辐射、杂食可适应食物匮乏、体型小需要能量少。恐龙灭绝后1000万年内,哺乳动物体型增大了1000倍。
鳄鱼是恐龙的远亲(同属主龙类),但它们在灭绝中幸存——可能是冷血代谢、能长时间不进食、淡水环境受冲击较小。体型也大幅缩减。海龟在海洋中幸存。蛇和蜥蜴也大部分存活。
所有大型恐龙、翼龙、沧龙、蛇颈龙、鱼龙全部灭绝。共性是:体型大、食物链顶端、需要大量食物——在"核冬天"中食物链崩溃后无法生存。大型植食恐龙依赖的高大松柏类也被摧毁。
"恐龙灭绝了"这句话不完全正确——灭绝的只是"非鸟恐龙",鸟类作为恐龙的直系后代活到了今天。所以每次你看到一只麻雀,你看到的就是一头小型兽脚类恐龙——它只是羽毛更多、没有牙、尾巴更短了而已。
恐龙死后,骨骼被沉积物迅速掩埋(河床、湖泊、火山灰),矿物质渗入骨骼孔隙替换有机质,经过数百万年矿化形成化石。这需要极为苛刻的条件——据估计,可能只有不到0.0001%的恐龙个体变成了化石。所以恐龙化石的"采样偏差"极大:水边动物、群体死亡的、有硬壳的更容易保存。我们看到的"恐龙世界"只是幸运保存下来的冰山一角。
不用破坏化石就能观察骨骼内部结构。内耳结构揭示平衡感和运动方式;脑腔形状反映脑区发达程度;鼻窦通道帮助还原呼吸和嗅觉。伤齿龙的脑腔CT显示其大脑皮层发达,确认它确实"最聪明"。
骨骼中氧同位素比例反映体温和生活环境。牙釉质碳同位素反映饮食结构。通过同位素分析,发现一些蜥脚类可能在不同季节迁徙到不同纬度,棘龙可能长期在水中活动(氧同位素接近水生动物)。
骨骼薄片可见生长线(像树木年轮),据此推算死亡年龄和生长速度。发现蜥脚类在快速生长期日增10-15公斤;霸王龙约18岁成熟,最高寿命约28-30岁。这与哺乳动物"成熟后停止生长"截然不同。
羽毛化石中保存了黑色素体的形状和排列——不同形状对应不同颜色。通过电子显微镜对比现代鸟类,已成功还原了中华龙鸟(栗色+白色尾环)、近鸟龙(黑白翅膀)、小盗龙(金属黑+冠羽)的颜色。这是近年最浪漫的发现。
| 地点 | 国家 | 代表发现 | 特色 |
|---|---|---|---|
| 辽宁热河生物群 | 中国 | 中华龙鸟、小盗龙、近鸟龙 | 带羽毛恐龙的圣地 |
| 自贡大山铺 | 中国 | 蜀龙、峨眉龙、气龙 | 侏罗纪蜥脚类化石群 |
| 戈壁沙漠 | 蒙古 | 迅猛龙、原角龙、窃蛋龙 | 搏斗化石、巢化石 |
| 地狱溪组 | 美国蒙大拿 | 霸王龙、三角龙 | 白垩纪末期经典层位 |
| 索伦霍芬 | 德国 | 始祖鸟 | 精细羽毛印痕保存 |
| 巴塔哥尼亚 | 阿根廷 | 阿根廷龙、南方巨兽龙 | 巨型恐龙产区 |
现代鸟类属于"兽脚亚目-虚骨龙类-鸟翼类"。鸡的基因组研究显示,鸡胚发育中关闭某些基因可以长出牙齿、长尾骨和爪指——这些都是恐龙的祖先性状。鸡和霸王龙的胶原蛋白化石对比高度相似。可以说,你吃的炸鸡,就是一头小型兽脚类恐龙。
从1854年伦敦水晶宫的巨型恐龙雕塑,到1993年《侏罗纪公园》掀起全球恐龙热,再到今天的《侏罗纪世界》,恐龙是人类最熟悉的灭绝动物。博物馆恐龙展厅永远是孩子们最爱的地方。恐龙玩具、动画片、纪录片——它们是连接科学与大众的桥梁。
恐龙骨骼化石的研究推动了骨骼病理学和生物力学发展。一些恐龙化石显示出骨癌、骨折愈合、关节炎等病理——证明恐龙也会得"老年病"。骨骼中空结构和气囊系统的发现启发了现代建筑轻量化设计。
恐龙的灭绝是地球史上五大灭绝事件之一,证明了"统治地位"不等于"生存保障"。一个全球性灾难可以瞬间抹掉1.6亿年的演化成果。今天人类活动导致的物种灭绝速度是背景灭绝率的100-1000倍——我们正在制造"第六次大灭绝"。恐龙灭绝不是遥远过去的故事,而是一面镜子。
过去十年突破性发现:恐龙骨骼化石中能保存胶原蛋白等有机分子。通过分析霸王龙和腕龙的胶原蛋白序列,确认了恐龙与鸟类/鳄鱼的亲缘关系。未来如果能提取更多古蛋白质,也许能像DNA一样还原更多生物学信息。
古生物学家杰克·霍纳领衔的"鸡龙计划"正在尝试通过调整鸡胚胎基因,让它长出恐龙特征——牙齿、长尾、爪指。已经成功让鸡胚短暂发育出牙齿(后被胚胎终止)。这不是"复活恐龙",而是验证演化发育生物学假说的工具。
机器学习正在帮助古生物学家从海量化石数据中发现规律。AI辅助骨骼分类、自动识别微体化石、模拟生物力学、预测化石发现地点。大数据分析揭示了恐龙多样性的宏观演化规律——白垩纪末期恐龙多样性可能已经下降,但这并不影响小行星灭绝说的成立。
中国已成为全球恐龙化石发现最丰富的国家之一。辽宁热河生物群、新疆准噶尔盆地、云南禄丰、四川自贡、甘肃、内蒙古——每年都有新发现。中国 discoveries 持续改写着恐龙演化的关键节点,尤其是带羽毛恐龙、鸟类起源、早期恐龙分化等方向。
恐龙研究从19世纪"大型爬虫"的刻板印象,走到了21世纪"有羽毛、会育幼、部分温血、与鸟类连续演化"的全新图景。这不是终点——每块新化石、每项新技术都可能再次刷新我们对恐龙的认知。恐龙学是一门活的科学,而我们正生活在它最激动人心的时代。